
보유 특허 상세 정보를 불러오는 중입니다...


연관 기술이전 로딩 중...
연관 연구자 로딩 중...



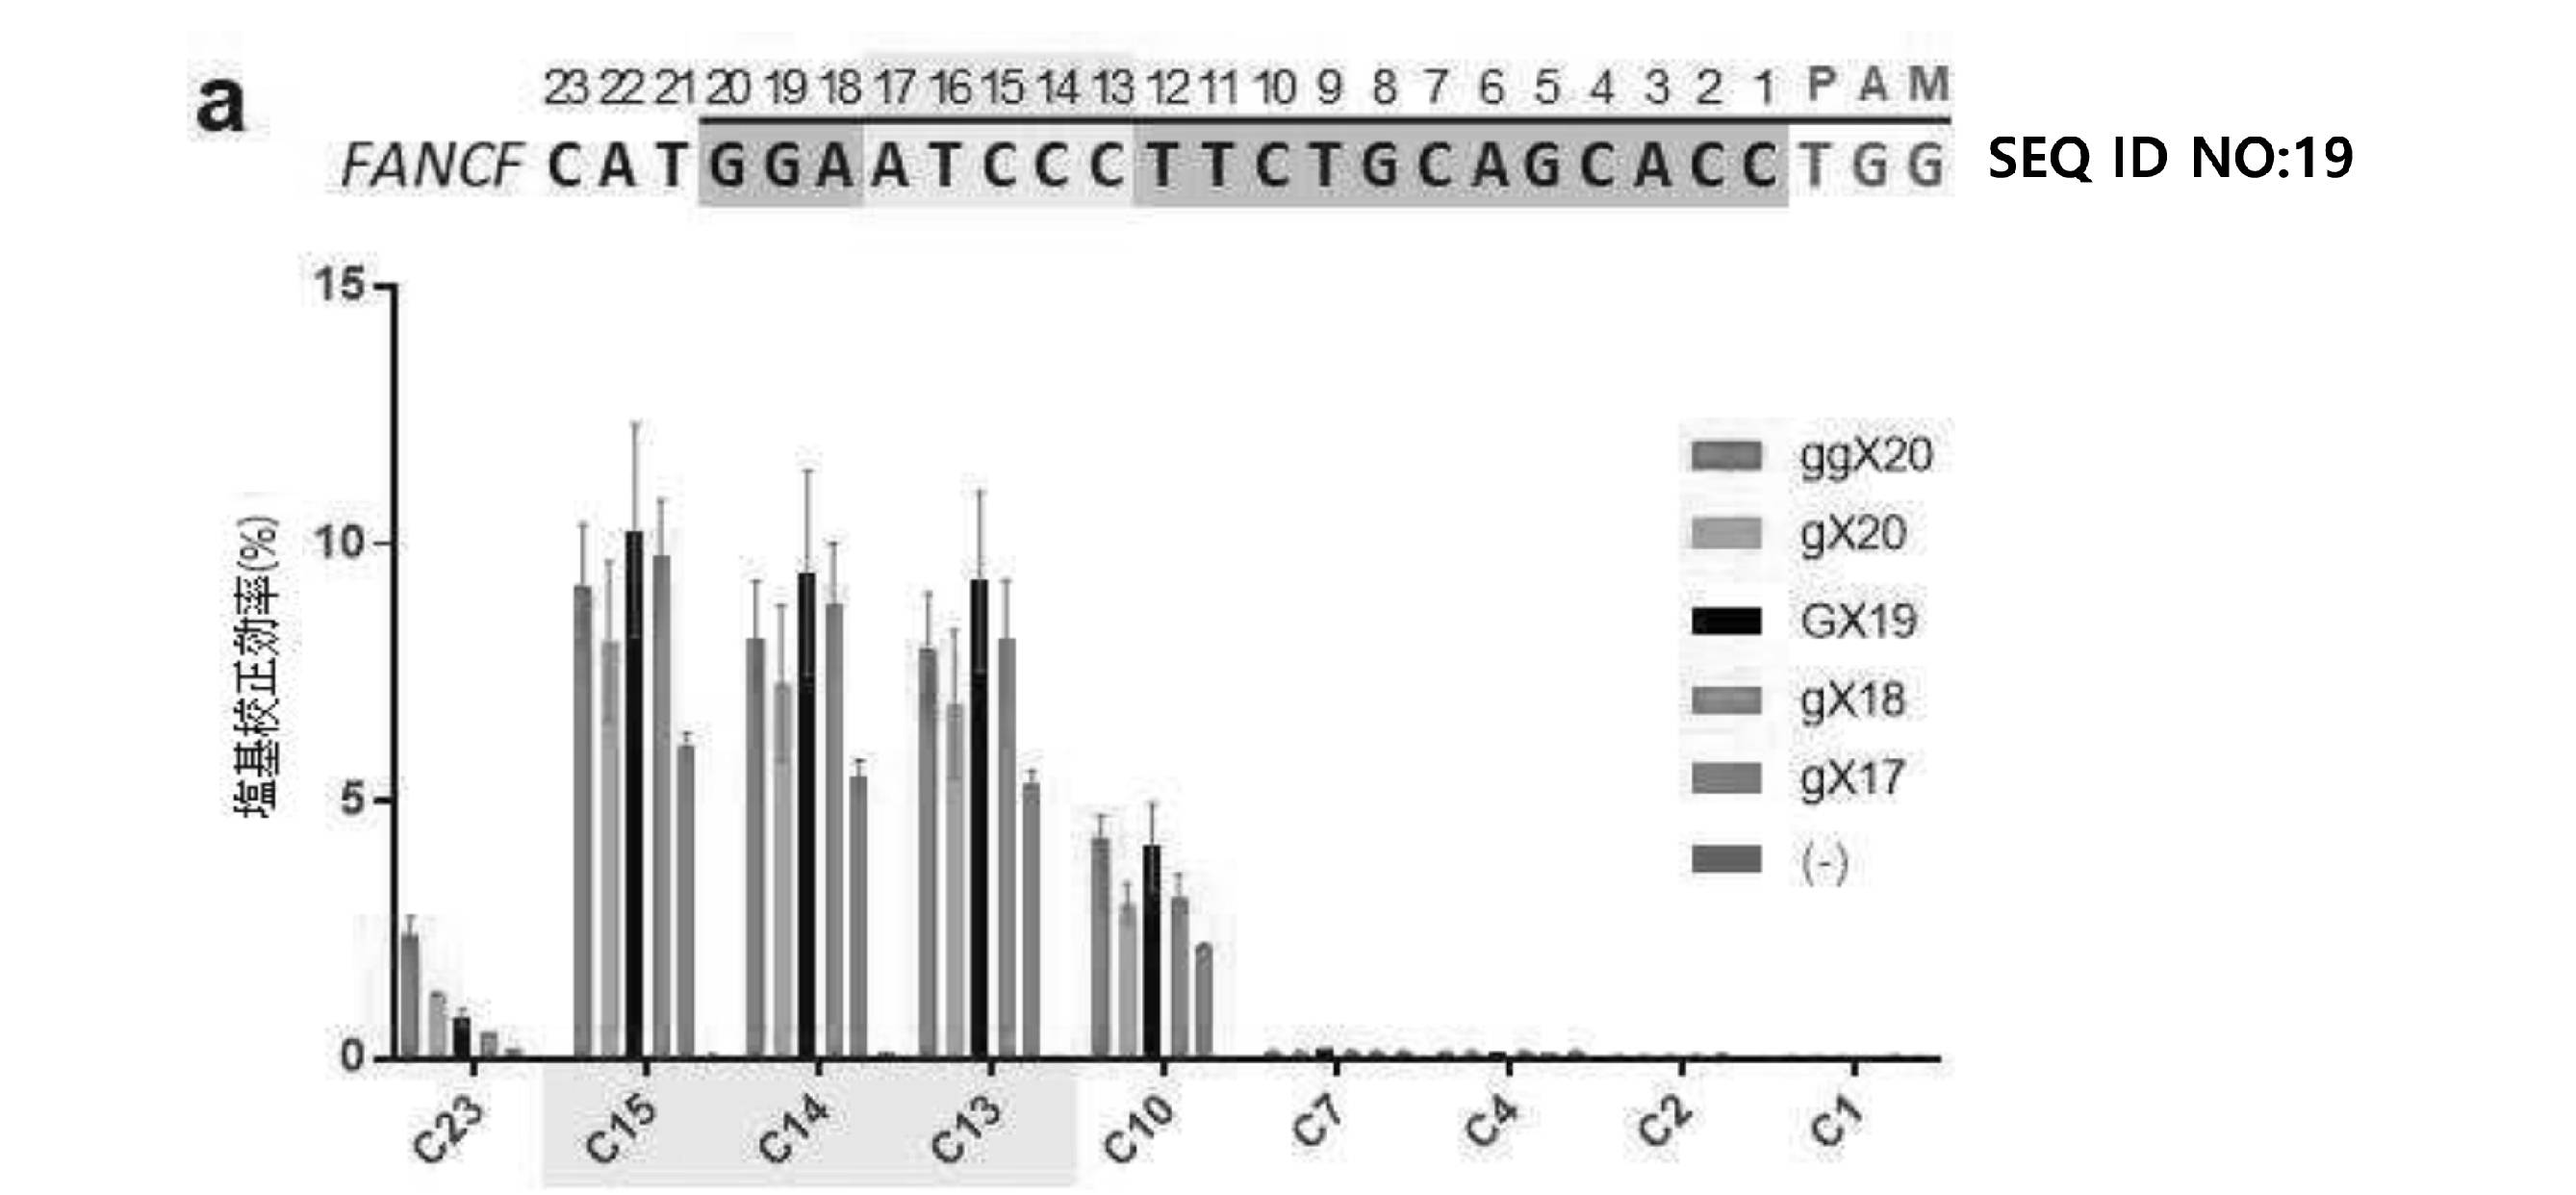


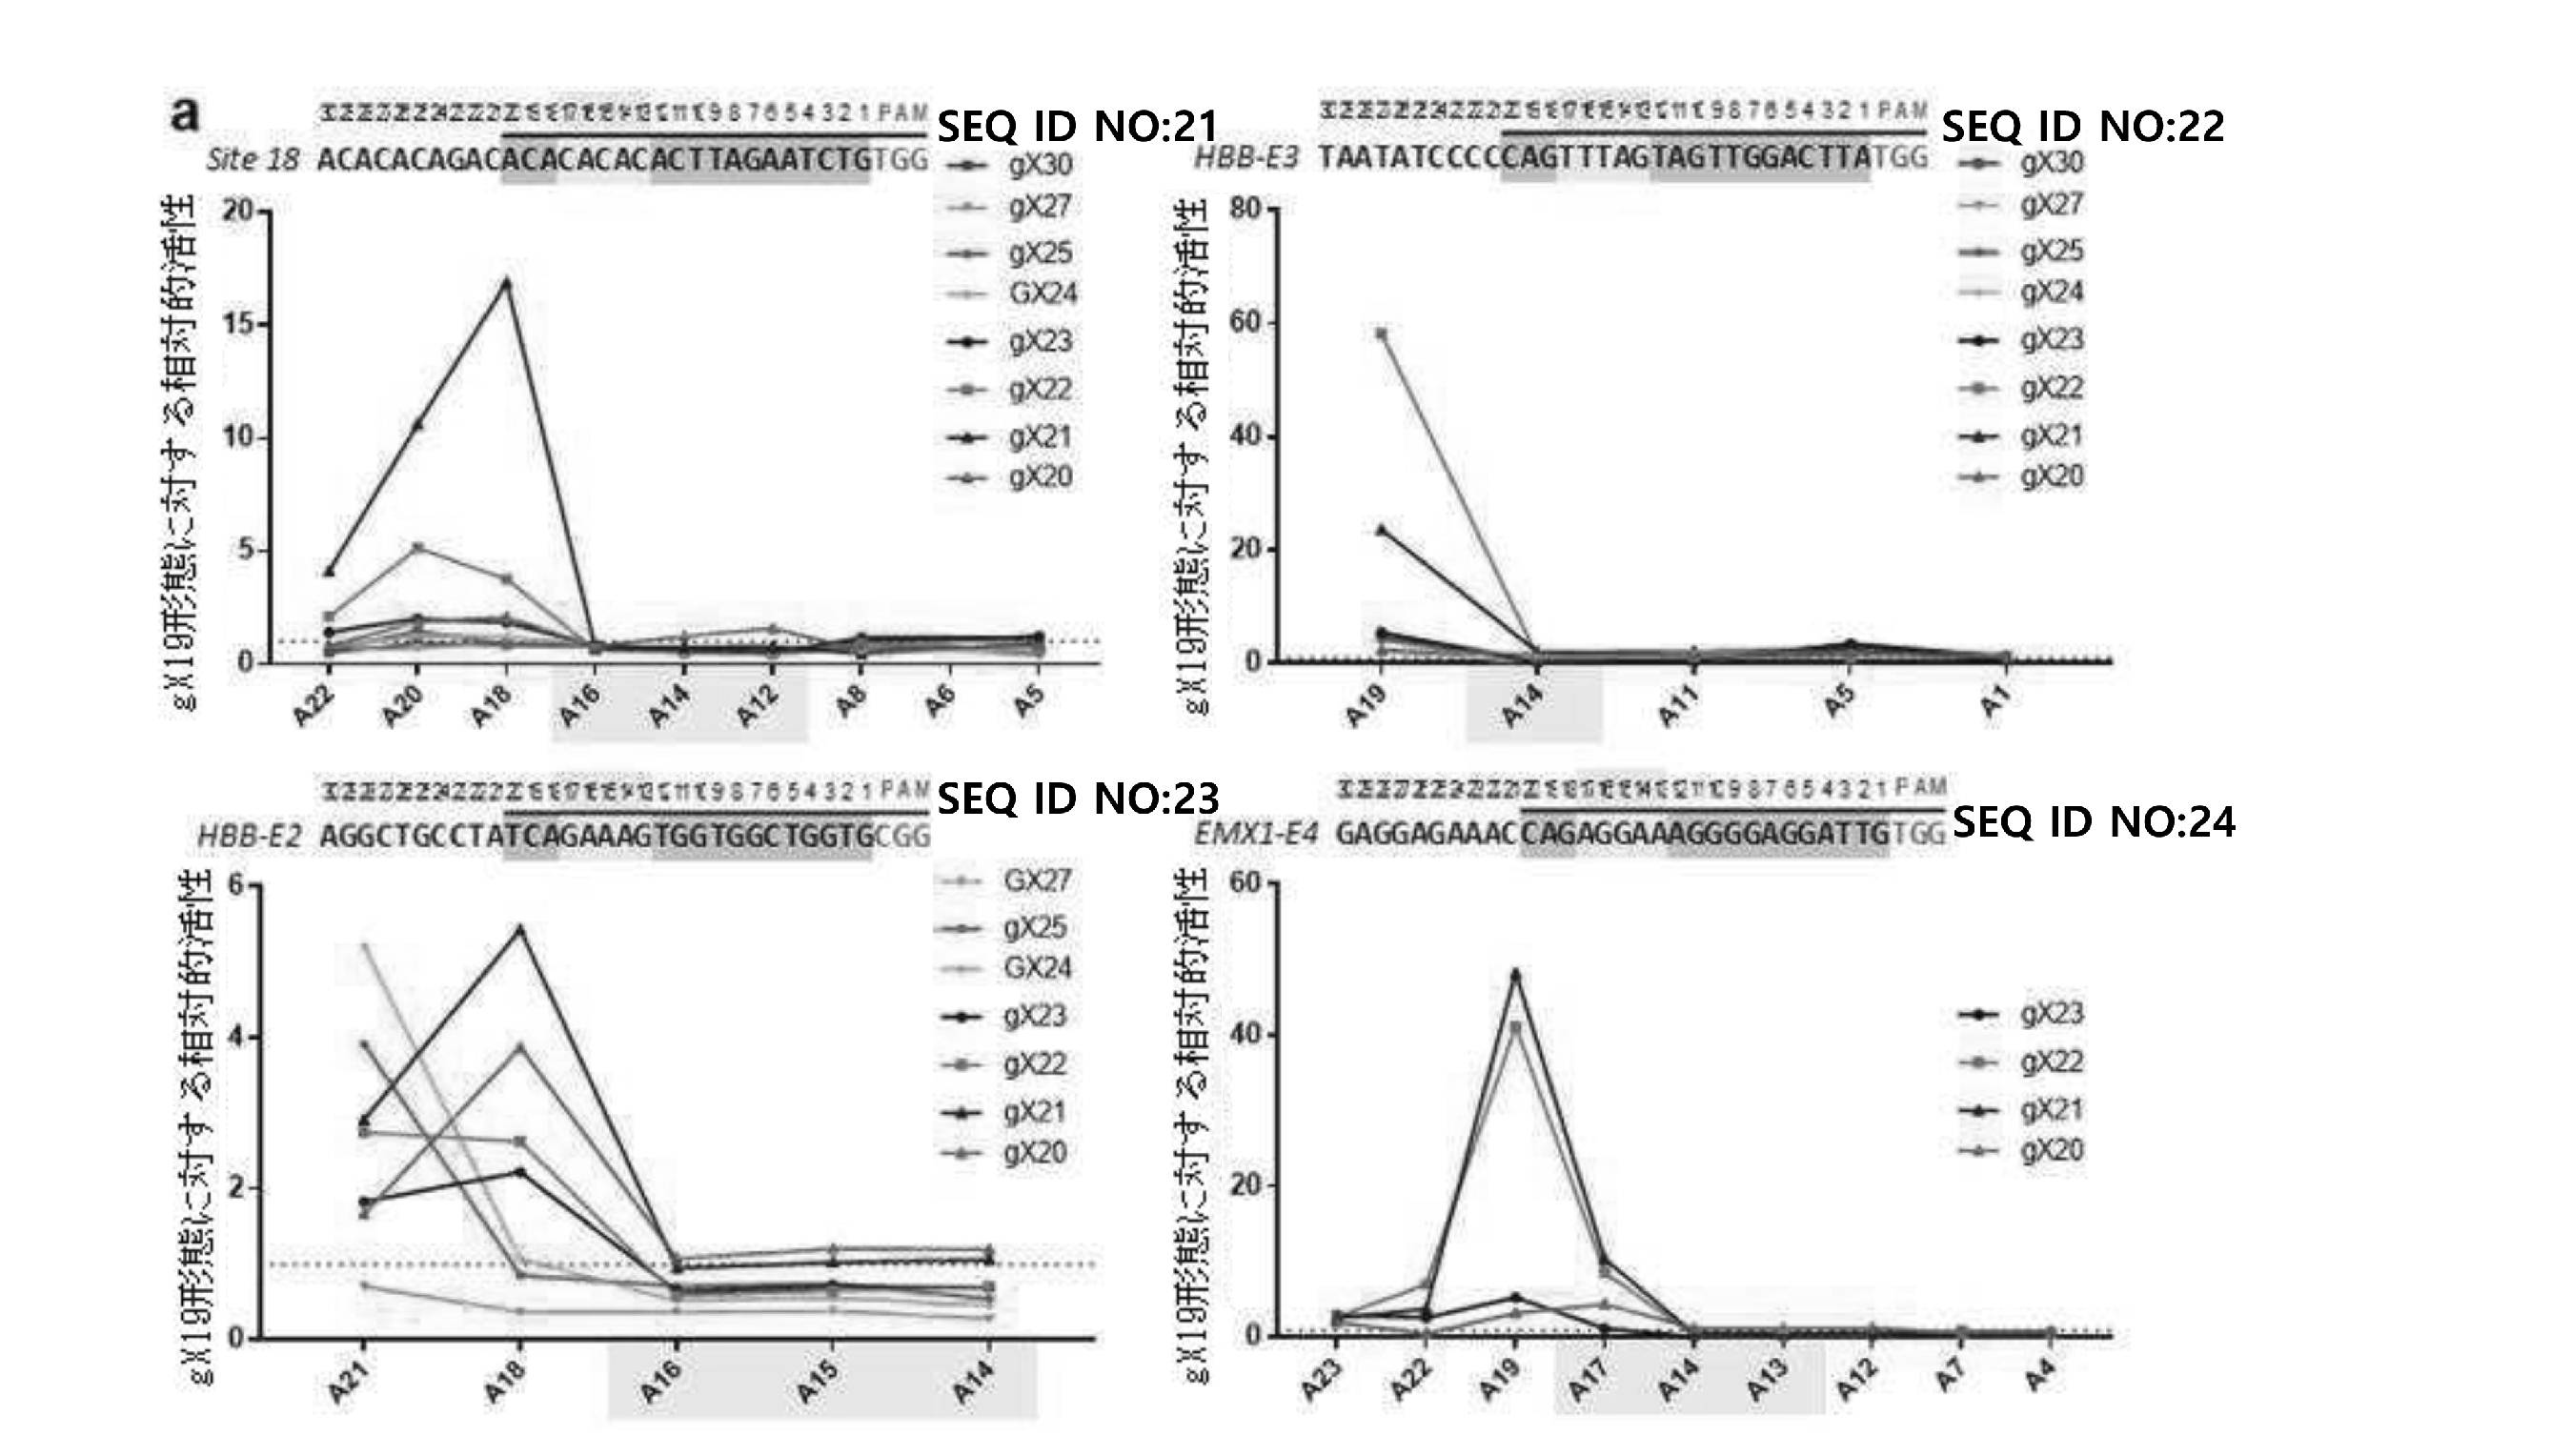


延長された単一ガイドrna及びその用途
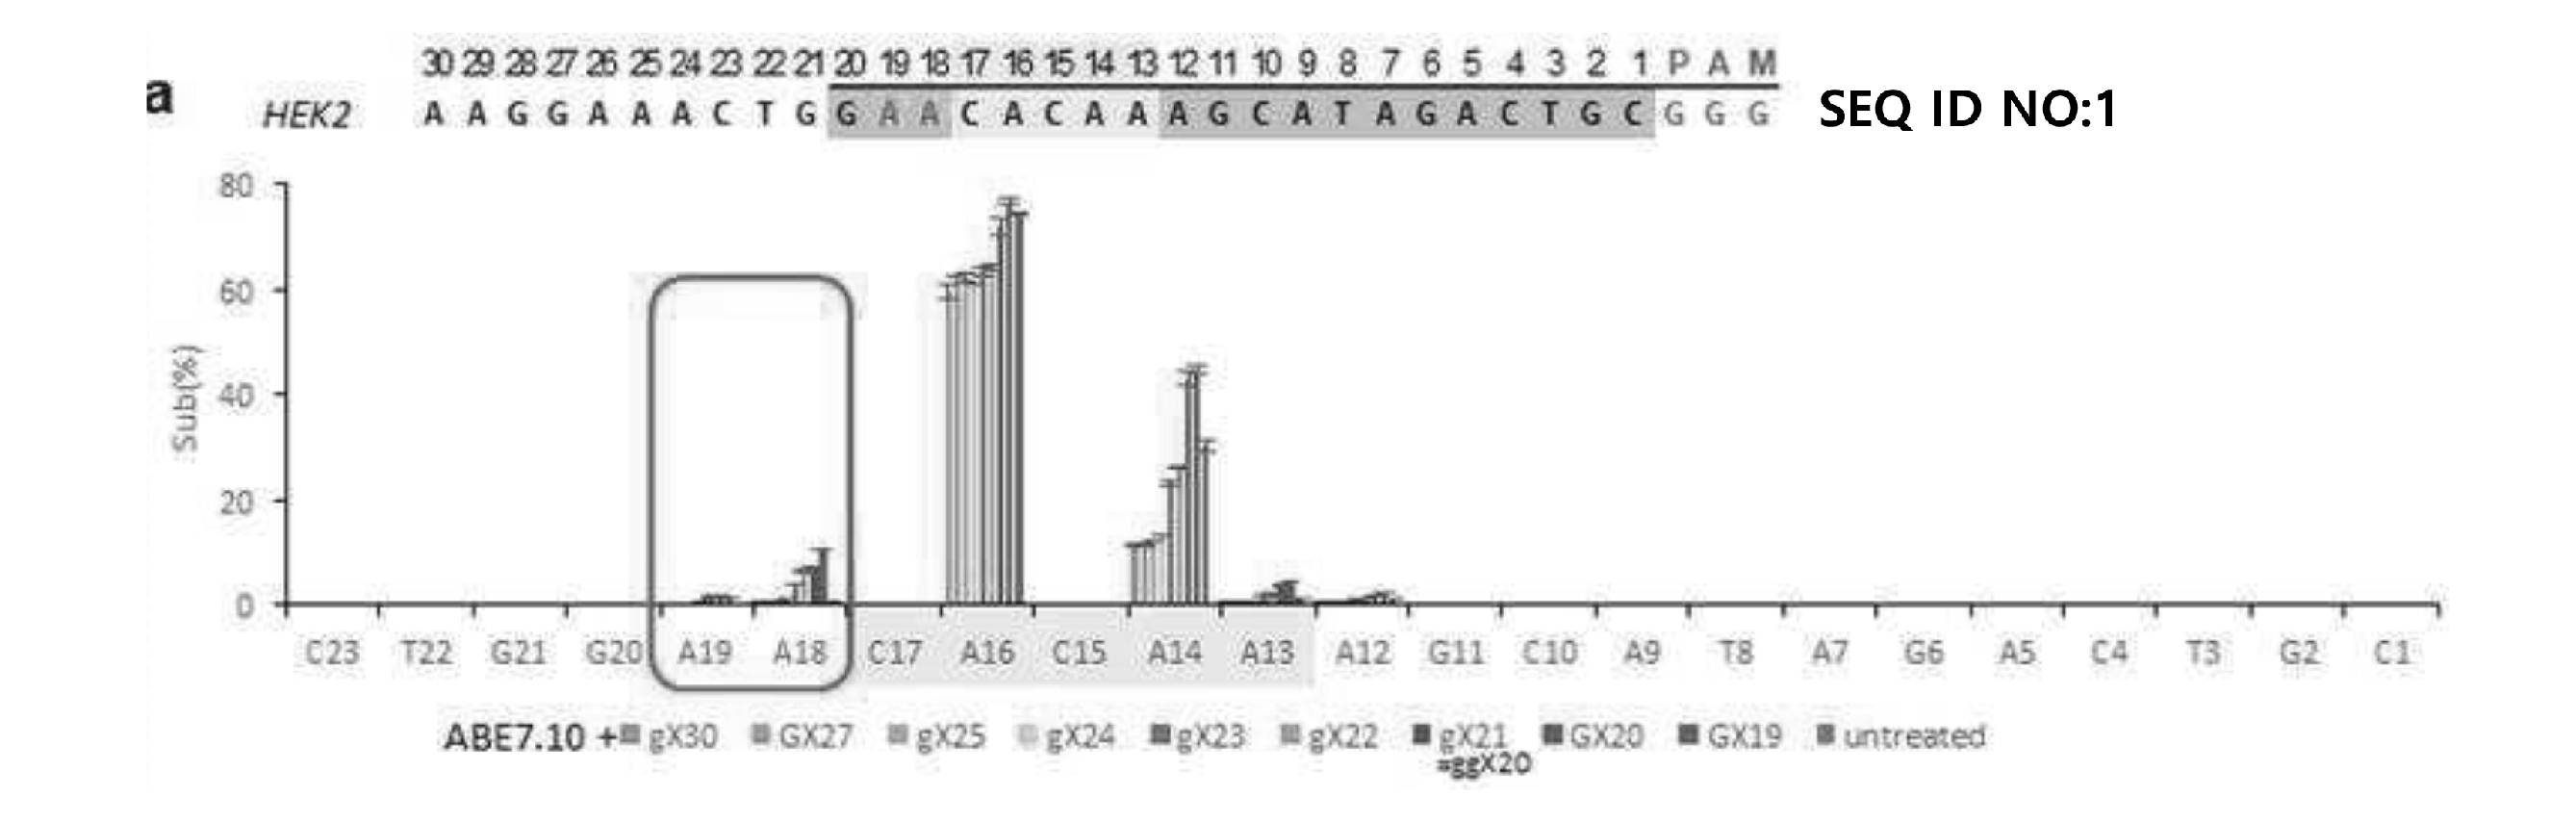
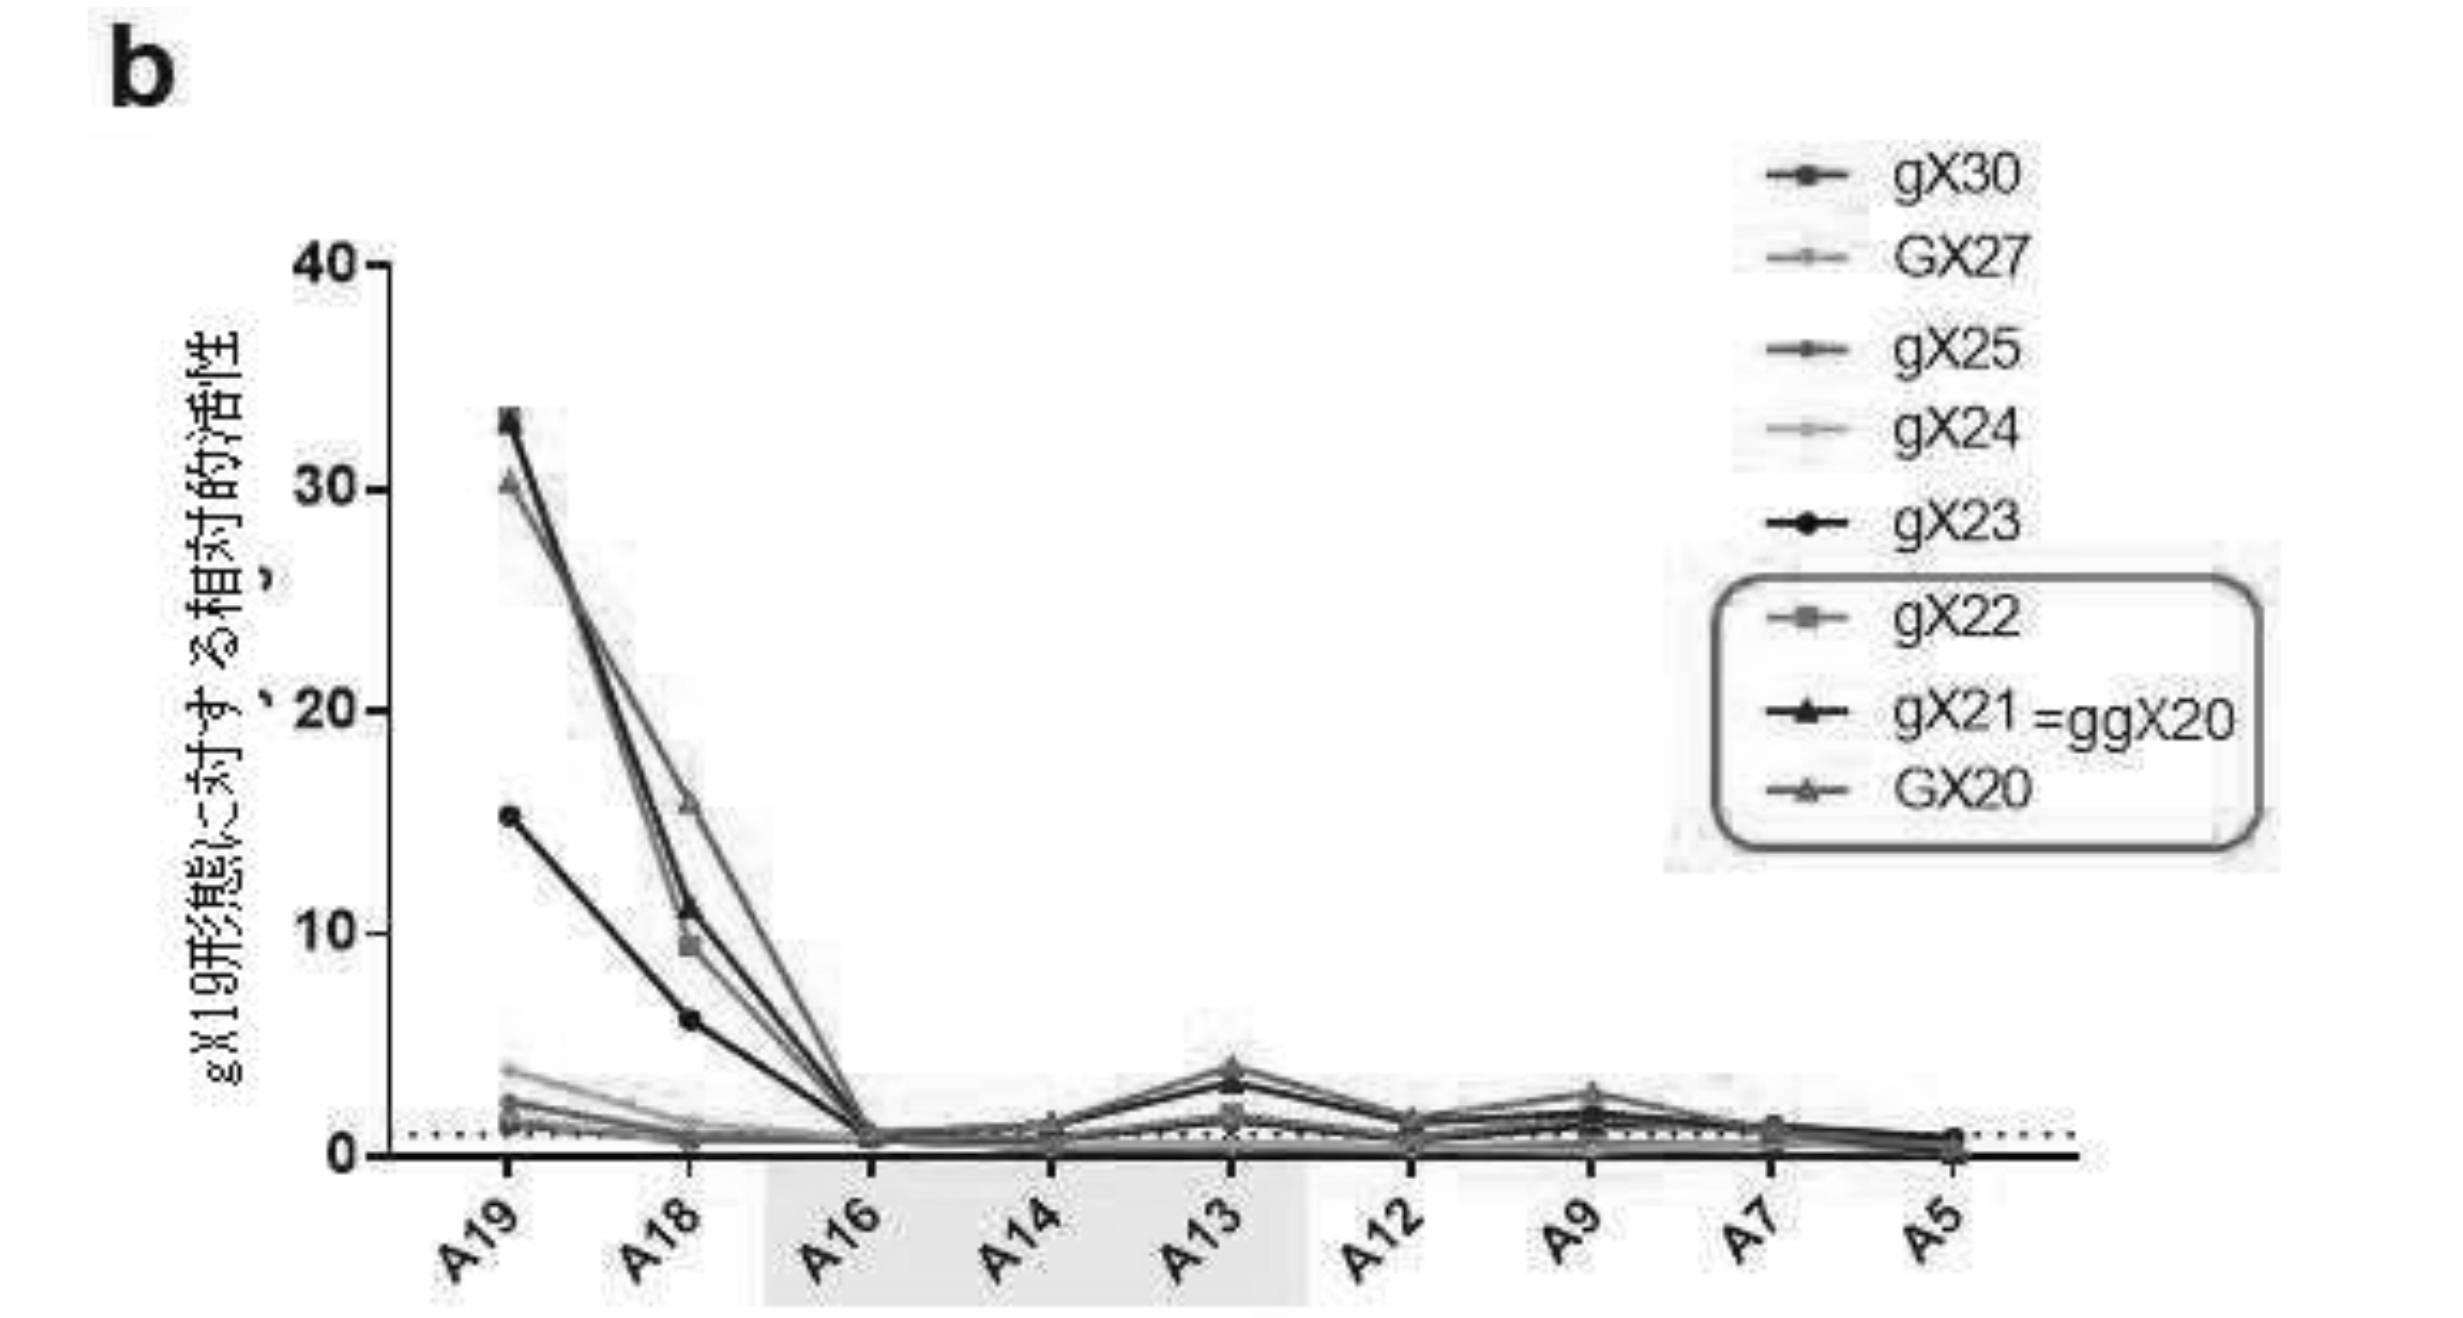
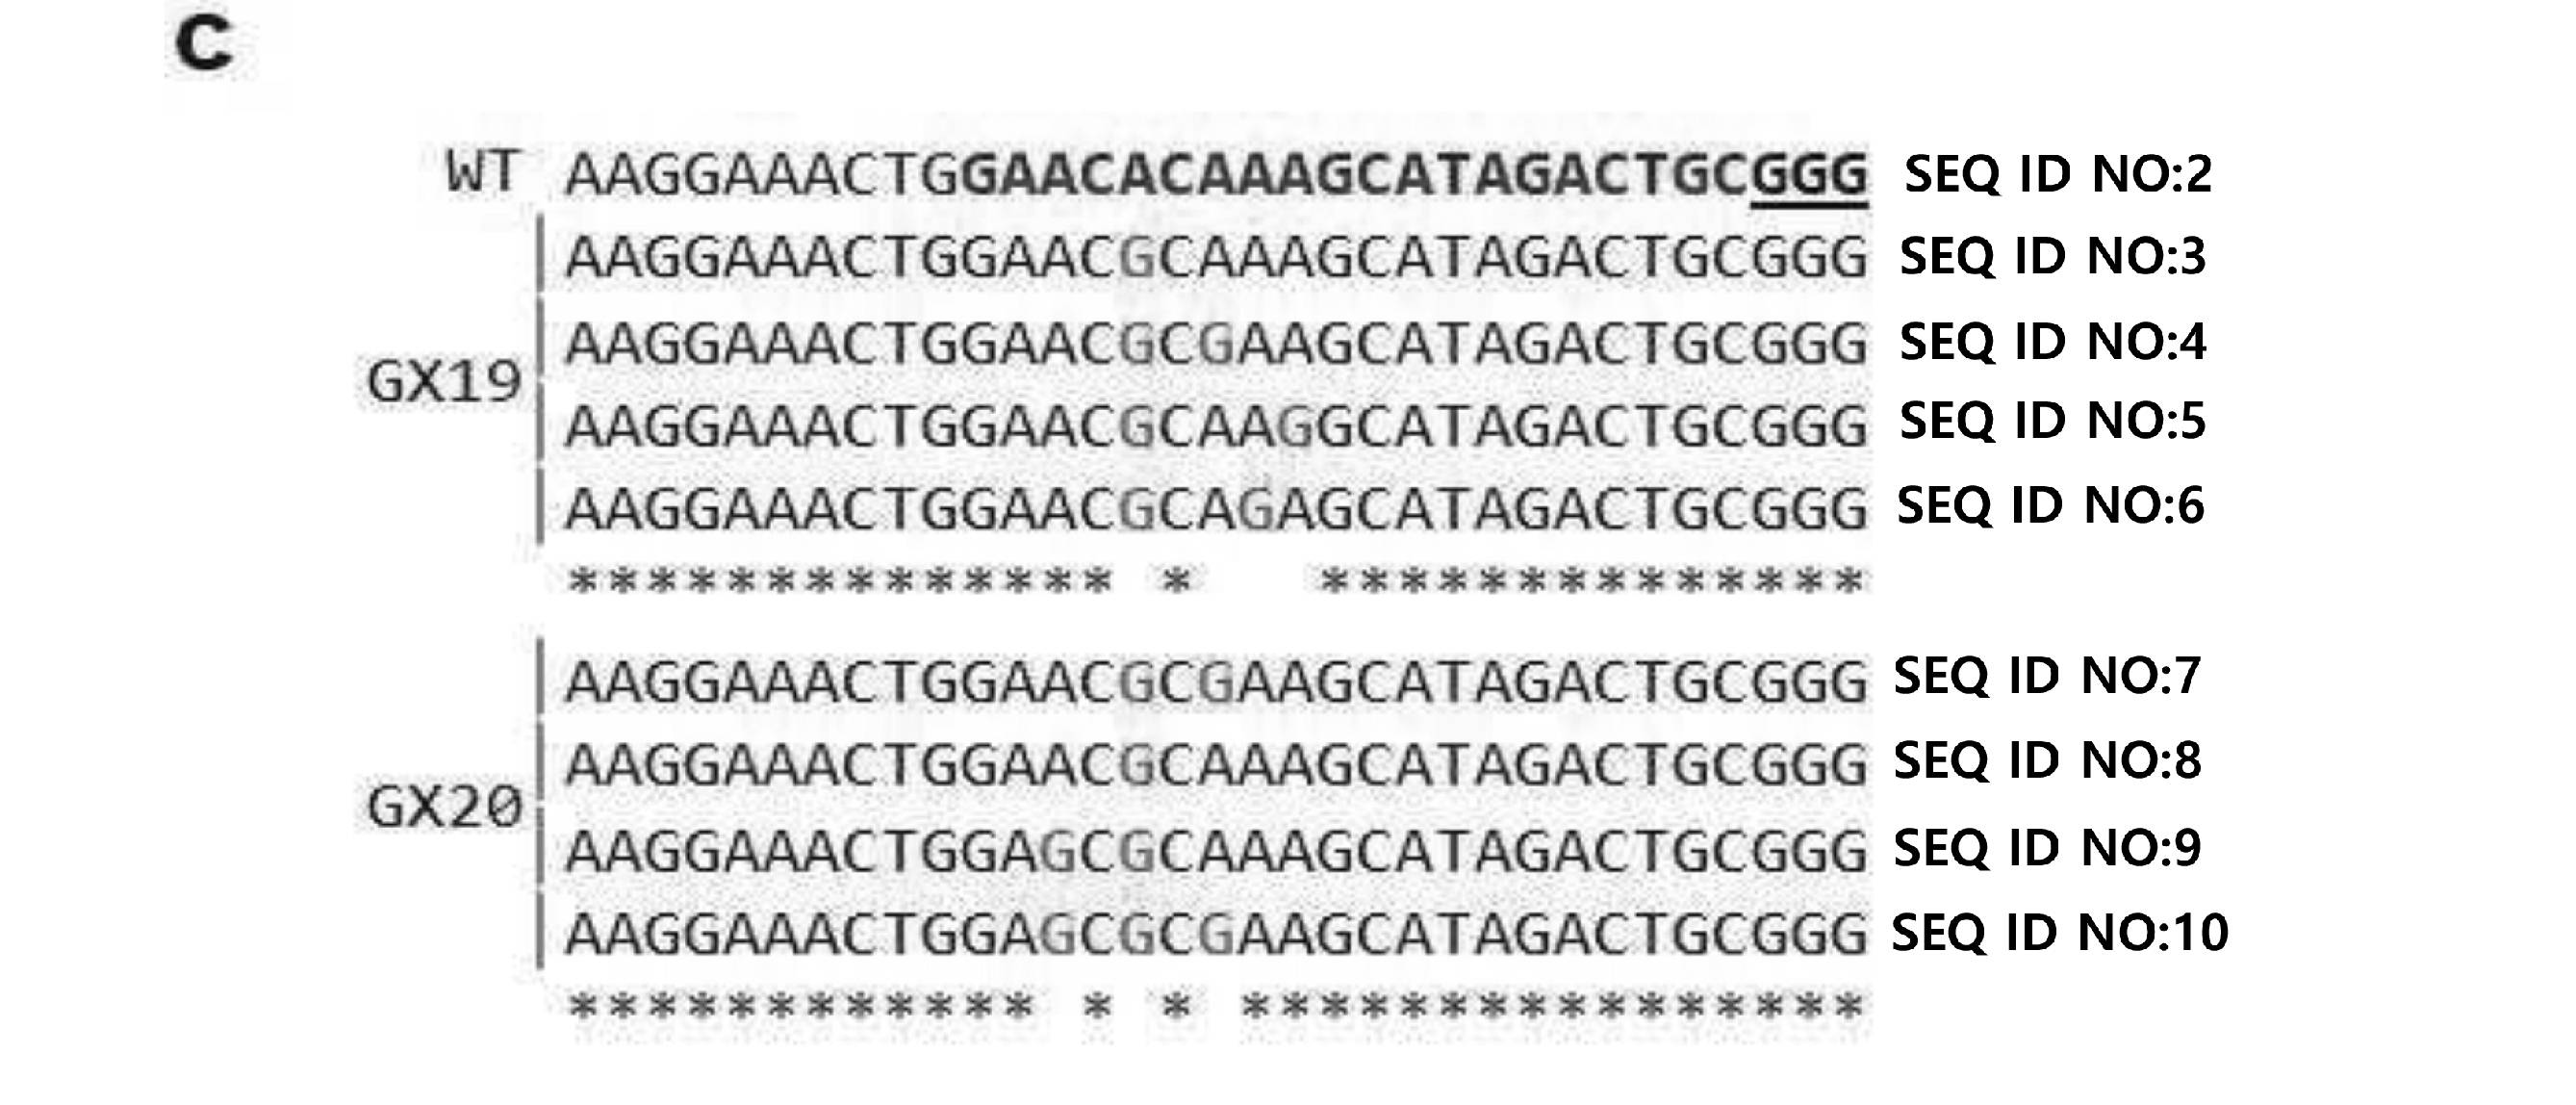
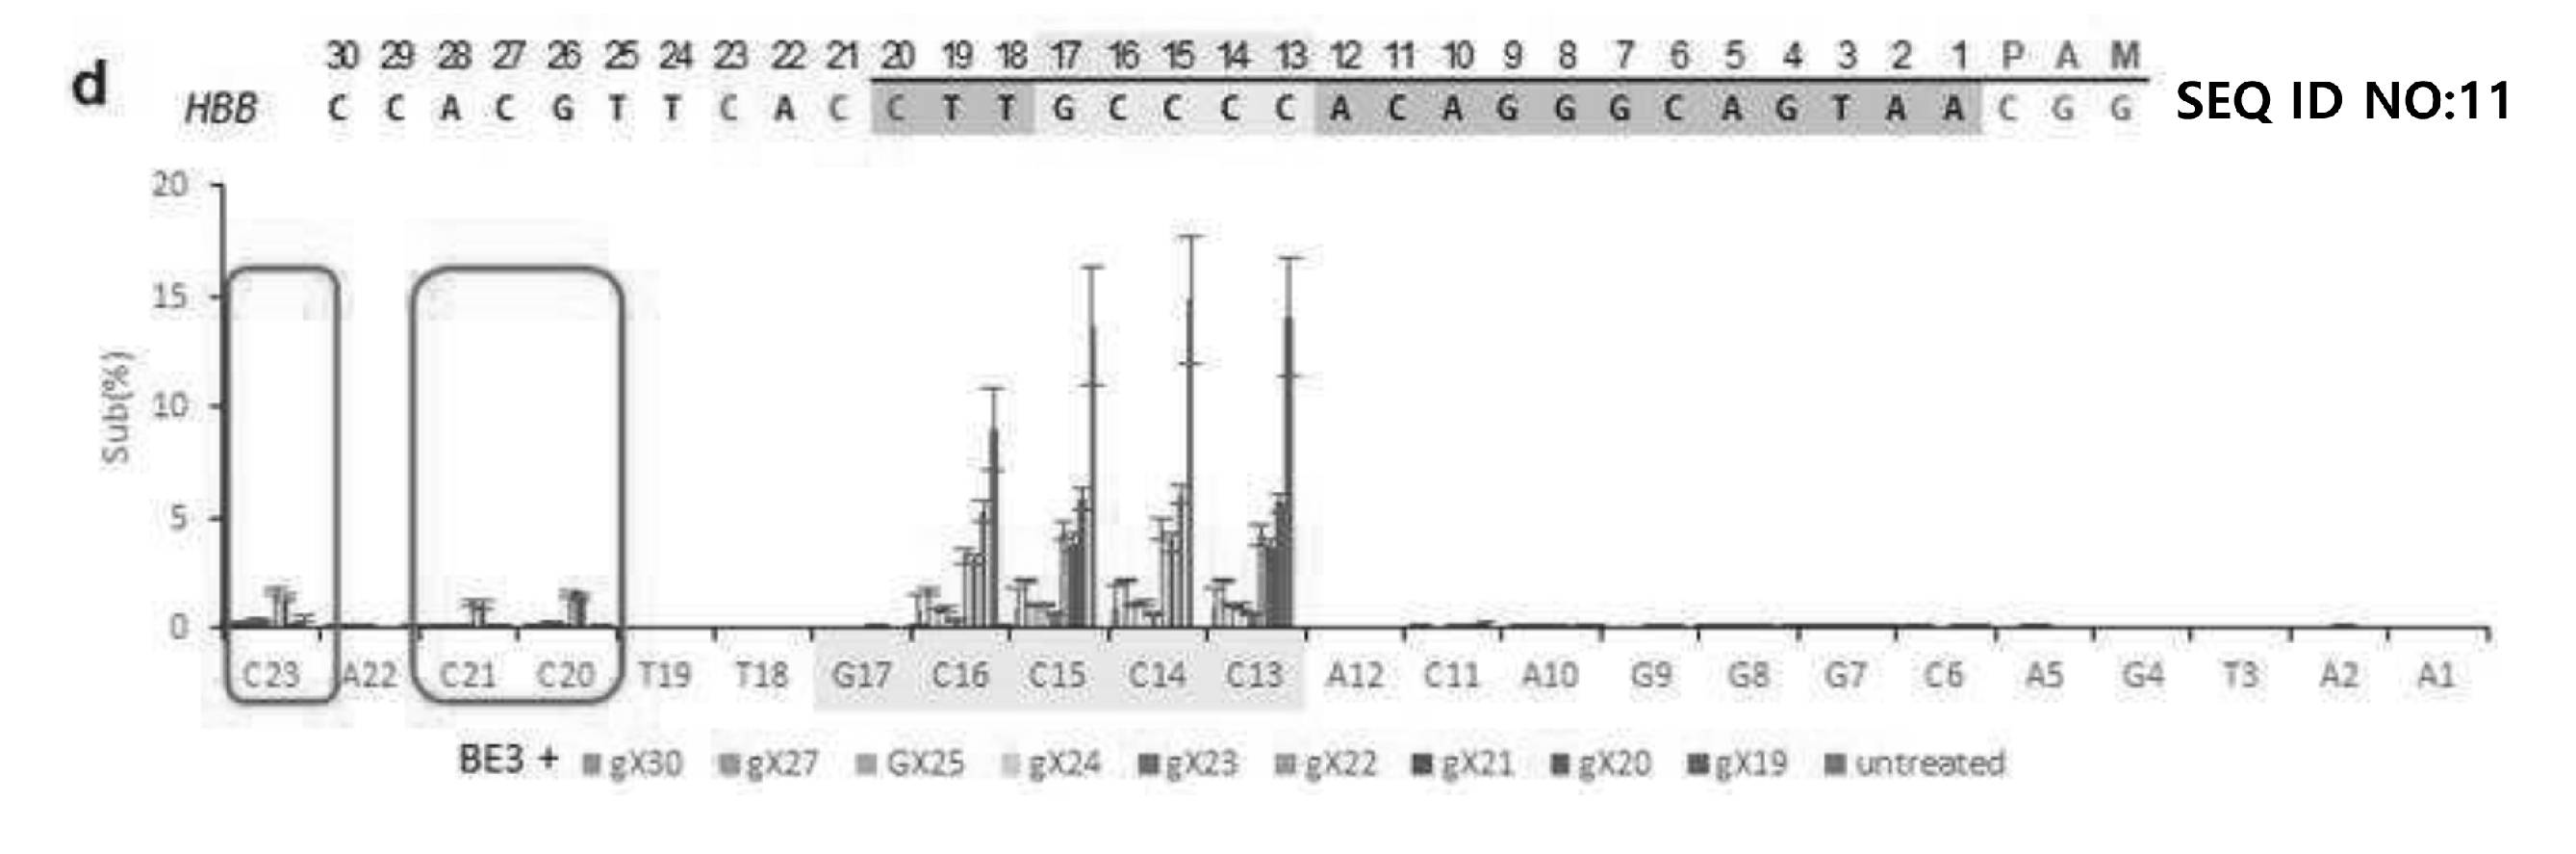
[특허 요약] 本発明は、延長されたガイドRNA及びこれを含む塩基校正用組成物;及び該塩基校正用組成物を用いた塩基校正方法及び遺伝子改変動物又は植物の製造方法に関する。 遺伝子編集技術は、バクテリオファージの感染によってバクテリオファージの断片をDNAとして記憶しているが、2次感染された時、遺伝子ハサミの役割を担うヌクレアーゼ(nuclease)であるCas9(CRISPRassociated protein 9:RNA-guided DNA endonuclease enzyme)で該当のDNAを切り除く免疫システムで始まった。これは、ガイドRNA(guide RNA,gRNA)が特定塩基配列を認識すると、Cas9タンパク質が該当の部位を切って直し得る遺伝子校正技術へと発展した(Ran FA et al.,Nat Protoc,8:2281-2308,2013,Woo JW et al.,Nat Biotechnol,33:1162-1164,2015)。 既存のCRISPR-Cas9遺伝子ハサミを変形して作られた塩基校正遺伝子ハサミ(Base-editor)は、DNAの両鎖を切らずに特定塩基を変えることができるという点で最近注目を受けている技術である。塩基校正遺伝子ハサミは、標的DNAと相補的な配列を有するsgRNAによって標的位置に結合した後、反対側に露出される単一鎖DNAに作動可能なデアミナーゼ(deaminase)によってシトシン(C)をウラシル(U)に、又はアデニン(A)をヒポキサンチン(I)に変える。変わった塩基はDNA修復過程及び複製過程中にチミン(T)とグアニン(G)に変わり、結果的にシトシン(C)->チミン(T)、アデニン(A)->グアニン(G)にDNA特定塩基を校正することができる。この時、遺伝子ハサミ(Base-editor)が作動可能な塩基校正範囲(Base editing window)は、PAM(Protospacer Adjacent Motif)からプロトスペーサー(protospacer)方向に13~17番目離れた位置と知られており、これを外れた範囲では効率が非常に低下する(図1a)。 そこで、本発明者らは、上記の問題点を補完するために、塩基校正遺伝子ハサミの標的位置を指定するsgRNAの形態及び長さを変形させる場合、塩基校正遺伝子ハサミの作動範囲をより拡張させ得ることを見出し、本発明を完成するに至った。 本発明の目的は、塩基校正遺伝子ハサミの作動範囲をより拡張させることができる延長されたガイドRNAを提供することにある。 本発明の他の目的は、デアミナーゼ、標的特異的ヌクレアーゼ、及び延長されたガイドRNAを含む、塩基校正遺伝子ハサミの作動範囲をより拡張させることができる塩基校正用組成物を提供することにある。 本発明のさらに他の目的は、前記塩基校正用組成物を用いた塩基校正方法に関する。 本発明のさらに他の目的は、前記塩基校正用組成物を用いた遺伝子改変動物又は植物の製造方法に関する。 前記目的を達成するために、本発明は、標的配列とハイブリダイズ可能な延長されたガイドRNAであって、5’末端に1~3個のグアニン(G)及び1~10個のヌクレオチドをさらに含むことを特徴とする塩基校正用ガイドRNAを提供する。 本発明はまた、(i)デアミナーゼ又はこれをコードする遺伝子、(ii)RNA-ガイドヌクレアーゼ又はこれをコードする遺伝子、及び(iii)標的配列とハイブリダイズ可能な延長されたガイドRNA又はこれをコードする遺伝子を含む塩基校正用組成物であって、前記延長されたガイドRNAは5’末端に1~3個のグアニン(G)及び1~10個のヌクレオチドをさらに含むことを特徴とする塩基校正用組成物を提供する。 本発明はまた、前記塩基校正用組成物を細胞に導入させる段階を含む塩基校正方法を提供する。 本発明はまた、(a)前記塩基校正用組成物を哺乳動物の胚又は真核植物の胚に導入させる段階;及び(b)前記胚を成長させて成体を得る段階を含む、突然変異が誘発されたヒト以外の哺乳動物又は真核植物の成体の作製方法を提供する。 sgRNA長による塩基校正遺伝子ハサミ(Base-Editor)作動を模式的に示す図である。既存方法であるGX19 sgRNA(a)を使用した時と拡張されたsgRNA(Extended sgRNA)(b)を使用した時、標的位置に結合した後に露出される単一鎖DNAに脱アミノ化(deamination)が起こり得る。拡張されたsgRNA(Extended sgRNA)を使用すると、PAMから5’方向に露出される単一鎖DNAが増え、より広い範囲で脱アミノ化が現れる。 HEK293T細胞株においてそれぞれの活性(activity)をディープシークエンシング(deep-sequencing)を用いて測定したsgRNA長による塩基校正範囲(base-editing window)の変化を示す図であり、図2aは、HEK2部位(HEK2 site)でsgRNA長によるABE7.10置換活性(ABE7.10 substitution activity)を塩基位置(base position)別に示すグラフであり、図2bは、GX19 sgRNAを使用した時と比較して相対的な置換活性[gX20~30活性/GX19活性]を示すグラフであり、図2cは、最も頻繁に現れる突然変異対立遺伝子(mutation allele)を示すものであり(WT配列において変異が導入された部分を赤色で表示)、図2dは、HBB部位(HBB site)でsgRNA長によるBE3置換活性を塩基位置別に示すグラフであり、図2eは、GX19 sgRNAを使用した時と比較して相対的な置換活性[gX20~30活性/GX19活性]を示すグラフであり、図2fは、最も頻繁に現れる突然変異対立遺伝子を表記したものである(WT配列において変異が導入された部分を赤色で表示)(GX19 sgRNAを使用した時に効率よく作動する位置として知られた塩基校正範囲を空色で表示)。 HEK293T細胞株においてそれぞれの活性をディープシークエンシングを用いて測定した、追加のミスマッチGを1個又は2個含んでいるsgRNAを使用した時、塩基校正範囲の変化を示す図であり、図3a及び図3cは、sgRNA長によるBE3置換活性を塩基位置別にFANCF部位(FANCF site)(a)とHBB部位(c)で確認した結果であり、図3b及び図3dは、GX19 sgRNAを使用した時と比較して相対的な置換活性[gX20~30活性/GX19活性]をFANCF部位(b)とHBB部位(d)で示すグラフである。 HEK293T細胞株においてそれぞれの活性をディープシークエンシング方法で測定した、4個の個別の部位でsgRNA長による塩基校正範囲の変化を示す図であり、図4aは、4個の部位でGX19 sgRNAを使用した時と比較して相対的なABE7.10の置換活性[gX20~30活性/GX19活性]を確認した結果を示すグラフであり、図4bは、GX19 sgRNAを使用した時と比較して相対的なBE3の置換活性[gX20~30活性/GX19活性]を確認した結果を示すグラフである(GX19 sgRNAを使用した時に効率よく作動する位置として知られた塩基校正範囲を空色で表示。)。 活性をディープシークエンシングを用いて分析した、油彩と豆においてsgRNA形態による塩基校正範囲の変化を示す図であり、図5aは、油彩のプロトプラストにおいてgX19 sgRNA及びgX20 sgRNAをAID2シトシン塩基校正遺伝子ハサミ(cytosine base-editor)と共に使用した時、シトシン位置による置換(substitution)効率を測定した結果であり、図5bは、sgRNA形態によって最も頻繁に現れる変異(mutation)が導入された対立遺伝子(allele)の変化を示し(gX20 sgRNAを使用した時にのみTAG終止コドンが作られることが確認できる。)、図5cは、豆のプロトプラストにおいてgX19 sgRNA及びgX20 sgRNAをAID2シトシン塩基校正遺伝子ハサミ(AID2 cytosine base editor)と共に使用した時、シトシン位置による置換効率を測定した結果であり、図5dは、sgRNA形態によって最も頻繁に現れる変異が導入された対立遺伝子の変化を示すものである(gX20 sgRNAを使用した時にのみTAG終止コドンが作られることが確認できる。)。 マウスにおいてsgRNA形態による塩基校正範囲の変化を示す図であり、図6aは、マウスの胚(embryo)に種々のsgRNAと共にABE 7.10 mRNAを微細注入(microinjection)した後、胚盤胞(blastocyst)段階でディープシークエンシングによって置換活性を分析した結果であり、図6bは、GX21 sgRNAを使用してABE 7.10 mRNAと共に胚に微細注入を行って得た仔マウス(pup)を分析した結果であり、所望のH420R突然変異を持つ3匹の仔マウスが得られた。 特に定義されない限り、本明細書で使われた全ての技術的及び科学的用語は、本発明の属する技術の分野における熟練した専門家によって通常理解されるのと同じ意味を有する。一般に、本明細書における命名法は、本技術分野でよく知られており、通常用いられるものである。 本発明では塩基校正遺伝子ハサミの標的位置を指定するsgRNAの形態及び長さを変形させることによって、塩基校正遺伝子ハサミの作動範囲をより拡張させることができる技術を提案する(図1b)。 図1に示すように、既存方法であるGX19 sgRNA(a)を使用した時と拡張されたsgRNA(b)を使用した時、標的位置に結合した後に露出される単一鎖DNAに脱アミノ化が起こり得る。拡張されたsgRNAを使用すると、PAMから5’方向に露出される単一鎖DNAが増え、より広い範囲で脱アミノ化が現れる。 通常のsgRNAはPAMから5’方向への20個のヌクレオチド(nt)の配列を用いるGX19又はgX19形態であったが、新しい方法ではPAMから5’方向への20個のヌクレオチドの前にミスマッチグアニン(G)を2個さらに付けたggX20形態、又は21個から30個のヌクレオチド配列を用いたgX21~gX30形態の拡張されたsgRNAを用いて実験した。ABE(Adenosine Base Editor)と拡張されたsgRNAを用いてHEK2部位に対してHEK293T細胞で実験した結果、既存のGX19 sgRNAではPAMから13~17番目のアデノシンにおいて変異が現れ、gX20/gX21/gX22sgRNAを使用した時は、18~19番目のアデノシンも変わったことが確認できた(図2a、図2b、及び図2c参照)。gX20/gX21/gX22sgRNAを使用して導入された18~19番目のアデノシン変異の効率は、GX19 sgRNAに現れる効率よりも10倍以上増加したことが確認できる(図2b)。同様に、CBE(Cytosine Base Editor)と拡張されたsgRNAを用いてHBB部位で確認した結果、gX20/gX22sgRNAを使用した時、20、21、23番目位置のシトシンに変異が導入されることを確認した(図2d、図2e、及び図2f参照)。のみならず、ミスマッチグアニンをさらに持っているggX20 sgRNAを使用した時、20~23番目位置のシトシンにおいてCBEによる変異が約3倍増加することが見られた(図3参照)。4個の個別の標的部位(target site)でCBEとABEに対してそれぞれ実験した時、GX19 sgRNAの代わりに拡張されたsgRNAを使用すれば、既存の塩基校正範囲(PAMから5’方向に13~17番目)よりも遠い地域である18~23番目の位置まで作動でき、その効率が最大で5倍~60倍増加することを確認した(図4参照)。 したがって、本発明は、一観点において、標的配列とハイブリダイズ可能な延長されたガイドRNAであって、5’末端に1~3個のグアニン(G)及び1~10個のヌクレオチド(それぞれ独立してA、T、C、及びGから選択可能)をさらに含むことを特徴とする塩基校正用ガイドRNAに関する。 本発明の延長されたガイドRNAは、単一鎖形態(single guide RNA;sgRNA)であり得る。前記延長されたガイドRNAは、通常のガイドRNA、例えば、sgRNA(標的化配列が20ntである;このうち、5’末端の最初のヌクレオチドは、対応DNA標的部位配列とマッチング(相補的)であるグアニン(G)又はミスマッチング(非相補的)であるグアニン(g)である)の5’末端に1~10個のヌクレオチド(それぞれ独立してA、T、C、及びGの中から選択され得る;一例において、対応DNA標的配列と相補的配列であり得る)をさらに含むことができる。このような延長された形態のsgRNAはそうでない場合と比較して塩基校正頻度及び/又は校正効率を増加させることができる。 また、前記延長されたsgRNAは、5’末端に1~3個のマッチング(対応DNA標的配列と相補的)又はミスマッチング(対応DNA標的配列と非相補的)のグアニン(G)をさらに含むことができる。前記5’末端にさらに含まれる1~10個の任意のヌクレオチドは、該当の標的部位の標的DNA配列と相補的配列であり得、これによって、標的部位においてPAMから5’方向に露出される単一鎖DNAの長さを伸ばしてより広い範囲で遺伝子校正(脱アミノ化)が起こるようにすることができる(例えば、標的部位においてPAMから5’方向に18~30nt又は18~22nt位置でも変異(塩基校正)が導入され得る)(図1b参照)。 他の観点において、本発明は、(i)デアミナーゼ又はこれをコードする遺伝子、(ii)RNA-ガイドヌクレアーゼ又はこれをコードする遺伝子、及び(iii)標的配列とハイブリダイズ可能な延長されたガイドRNA又はこれをコードする遺伝子を含む塩基校正用組成物に関する。 本発明の一態様としては、(1)デアミナーゼ、及びこれをコードする遺伝子、(2)標的特異的ヌクレアーゼ(RNA-ガイドヌクレアーゼ)又はこれをコードする遺伝子、及び(3)標的遺伝子の標的部位とハイブリダイズ可能な(又は、相補的核酸配列を有する)ガイドRNA又はそのコーディングDNA(又は、コーディングDNAを含む組換えベクター)を含む塩基校正用組成物を提供する。この時、前記ガイドRNAは、前述したように、通常のガイドRNA、例えば、sgRNAの5’末端に1~10個のヌクレオチド(それぞれ独立してA、T、C、及びGの中から選択され得る;例えば、対応標的配列と相補的配列である。)をさらに含むものであり得、それに加えて、任意に、sgRNAの5’末端に1~3個のマッチング又はミスマッチングのグアニン(G)をさらに含む延長されたガイドRNAであり得る。 前記塩基校正用組成物は、真核細胞において塩基校正(例えば、塩基置換)活性を有するものであり得る。前記真核細胞は真核動物の細胞、例えば胚細胞、又は真核植物(例えば、藻類、単子葉植物、双子葉植物など)の細胞であり得、一具体例において、哺乳動物細胞、例えば哺乳動物の胚細胞、又は真核植物の細胞であり得る。本明細書に用いられたコーディング遺伝子は、cDNA、rDNA又はこれを含む組換えベクター、又はmRNAの形態で使用され得る。 前記デアミナーゼは、真核細胞において特定塩基からアミン基を除去する活性を有する酵素を総称するものであり、例えば、シチジンをウリジンに転換させるシチジンデアミナーゼ及び/又はアデノシンデアミナーゼであり得る。一例において、前記デアミナーゼはAPOBEC1(apolipoprotein B editing complex 1)、AID(activation-induced deaminase)、tadA(tRNA-specific adenosine deaminase)などからなる群から選ばれる1種以上であり得るが、これに制限されるものではない。このような塩基転換(例えば、シチジンをウリジンに転換)によって真核細胞において単一ヌクレオチド置換を誘導することができる。 一例において、前記塩基校正用組成物は、(1)デアミナーゼ又はこれをコードする遺伝子(mRNA又はコーディングDNAを含む組換えベクター)、(2)RNA-ガイドヌクレアーゼ又はこれをコードする遺伝子(mRNA又はコーディングDNAを含む組換えベクター)、及び(3)延長されたガイドRNA又はこれをコードする遺伝子(DNA)に加えて、(4)ウラシルDNAグリコシラーゼ抑制剤(uracil DNA glycosylase inhibitor:UGI)又はこれをコードする遺伝子、及び/又は(5)核局在化配列(NLS)又はこれをコードする遺伝子をさらに含むことができる。 本発明の前記塩基校正用組成物において、前記デアミナーゼ、RNA-ガイドヌクレアーゼ、及び任意にUGI及び/又はNLSが連結された融合タンパク質又はそれらのコーディング遺伝子が連結された融合遺伝子形態で用いられる場合、それぞれのタンパク質又は遺伝子の間のうち一つ以上、例えば、前記デアミナーゼとRNA-ガイドヌクレアーゼとの間、ヌクレアーゼとUGIとの間、及びUGIとNLSとの間のうち一つ以上に適切なリンカー(融合タンパク質の場合、ペプチドリンカー(3~30、又は3~20アミノ酸)、融合遺伝子の場合、オリゴヌクレオチドリンカー(9~90又は9~60nt))をさらに含むことができる。 一例において、前記RNA-ガイドヌクレアーゼは、遺伝子二重鎖切断活性を喪失するように変形された変形RNA-ガイドヌクレアーゼであり得る。 前記変形RNA-ガイドヌクレアーゼは、標的遺伝子の一方の鎖を切断(ニック(nick)生成)するよう変形された変形Cas9(CRISPR関連タンパク質9)又は変形Cpf1(プレボテラ(Prevotella)及びフランシセラ1(Francisella 1)由来CRISPR)システムであり得る。一例において、前記変形RNA-ガイドヌクレアーゼは、Cas9ニッカーゼ(Cas9 nickase;nCas9)又は触媒活性欠乏Cas9(catalytically-deficient Cas9;dCas9)などからなる群から選ばれるものであり得る。 本発明において、前記塩基校正用組成物がデアミナーゼコーディング遺伝子及びRNA-ガイドヌクレアーゼコーディング遺伝子を含む場合、前記コーディング遺伝子はコーディングDNA又はmRNAであり得る。また、前記デアミナーゼコーディング遺伝子及びRNA-ガイドヌクレアーゼコーディング遺伝子はmRNAの形態で含まれたり、或いは前記遺伝子(DNA)をそれぞれ別個のベクターに含む組換えベクター(すなわち、デアミナーゼコーディングDNAを含む組換えベクター及びRNA-ガイドヌクレアーゼコーディングDNAを含む組換えベクター)又は一つのベクターに共に含む組換えベクターの形態で含まれ得る。 前記ガイドRNAはCRISPR RNA(crRNA)、トランス活性化(trans-activating)crRNA(tracrRNA)、crRNA及びtracrRNA(crRNA及びtracrRNAの複合体)を含む二重ガイドRNA、又は単一ガイドRNA(sgRNA)であり得る。一例において、前記塩基校正用組成物は、デアミナーゼ及び変形RNA-ガイドヌクレアーゼをコードするmRNAとガイドRNAを含んだり、或いはデアミナーゼ及び変形RNA-ガイドヌクレアーゼとガイドRNAを含むリボ核酸タンパク質(ribonucleoprotein;RNP)を含むことができる。前記リボ核酸タンパク質は、デアミナーゼ及び変形RNA-ガイドヌクレアーゼとガイドRNAを混合物の形態で含んだり、或いはデアミナーゼ及び変形RNA-ガイドヌクレアーゼとガイドRNAが結合した複合体の形態で含むことができる。 本発明はさらに他の観点において、前記塩基校正用組成物を細胞に導入させる段階を含む塩基校正方法に関する。 他の例は、前記塩基校正用組成物を細胞に導入させる段階を含む、塩基校正方法を提供する。前記細胞は真核細胞であり得、前記塩基校正方法は真核細胞において塩基校正(例えば、塩基置換)を行うものであり得る。 前記真核細胞は、真核動物の細胞、例えば、真核動物の胚細胞、及び/又は真核植物細胞であり得、一具体例において、哺乳動物細胞、例えば哺乳動物の胚細胞、及び/又は真核植物細胞であり得る。前記塩基校正方法によって真核細胞(例えば、真核動物の胚細胞及び/又は真核植物細胞)において40%以上、45%以上、50%以上、55%以上、60%以上、65%以上、70%以上、75%以上、80%以上、85%以上、90%以上、95%以上、97%以上、99%以上又は100%の塩基転換率(塩基置換率)を達成することができる。また、前記塩基校正方法は、塩基置換によって遺伝子(例えば、コーディング配列)内に終結コドンを生成して前記遺伝子を不活性化(knock-out)させたり、或いはタンパク質を生成しない非コーディングDNA配列に変異を導入するなど、様々な突然変異を誘発させることができる。 本発明の一態様では、これに基づき、sgRNA長を伸ばすことによってより広い範囲で塩基校正が可能であることを、油彩(Brassica napus)と豆(Glycine max)で調べてみた。油彩の子葉(cotyledon)に由来のプロトプラストにおいて除草剤抵抗性遺伝子であるALS遺伝子を標的できるgX19及びgX20 sgRNAをAID2塩基校正遺伝子ハサミ(Base-Editor)に形質感染(transfection)した。その結果、gX20 sgRNAを使用した時、20番目位置のシトシンがチミンに変わり(図5a)、この場合にのみ終止コドンが生じて当該遺伝子が不活性化された(図5b)。他の作物である豆のカルス(callus)から得たプロトプラストに形質感染してALS遺伝子を標的した時、同様に、gX20 sgRNAを使用した時、20番目位置のシトシンがチミンに変わる効率が増加することを確認した(図5c及び図5d参照)。最後に、マウスのチロシナーゼ遺伝子に白皮症誘発突然変異(albinism-causing mutation)と知られたH420R置換(H420R substituion)を導入するためにABEを使用した。チロシナーゼを標的するsgRNAの形態を替えてABE mRNAと共にマウス胚(mouse embryo)に微細注入した後、胚盤胞段階で分析した結果、gX19に比べてGX20やGX21 sgRNAを使用した時、18番目位置のアデノシンが変わる効率が増加することが見られた(図6a)。所望のH420R突然変異を導入するためには18番目アデノシンが変わらなければならず、当該位置を最も高い効率で変え得るGX21 sgRNAを用いて仔マウスを得た。このうち、3匹の仔マウスでH420R突然変異を持っていることが確認できた(図6b)。このように既存の塩基校正範囲外の5’方向の塩基を校正しなければならない場合、一般GX19 sgRNAよりは拡張されたsgRNAを使用する方がより効率的であることが確認できた。 したがって、本発明は、さらに他の観点において、(a)前記塩基校正用組成物を哺乳動物の胚又は真核植物の胚に導入させる段階;及び(b)前記胚を成長させて成体を得る段階を含む突然変異が誘発されたヒト以外の哺乳動物又は真核植物の成体の作製方法に関する。 特に、本発明の前記塩基校正用組成物は、哺乳動物の胚又は真核植物の胚に適用され、所望する遺伝子が不活性化されたり所望する突然変異が誘発された哺乳動物又は真核植物の成体作製に有用に適用することができる。 前記細胞に塩基校正用組成物を導入する段階は、前記細胞にデアミナーゼ又はデアミナーゼコーディング遺伝子、RNA-ガイドヌクレアーゼ又はRNA-ガイドヌクレアーゼコーディング遺伝子、及び延長されたガイドRNA又は延長されたガイドRNAコーディング遺伝子を導入させる段階であり得る。前記コーディング遺伝子の一つ以上はそれぞれ別個の又は一つの組換えベクターに含まれて導入され得る。 一例において、前記細胞に塩基校正用組成物を導入する段階は、 1)前記細胞をデアミナーゼコーディングDNA、RNA-ガイドヌクレアーゼコーディングDNA、及び延長されたガイドRNAコーディング遺伝子をそれぞれ含んだり、或いはこれらのうち2つ以上を含む組換えベクターで形質感染させたり、 2)前記細胞にデアミナーゼ、RNA-ガイドヌクレアーゼ、及び延長されたガイドRNA(例えば、デアミナーゼ、RNA-ガイドヌクレアーゼ、及び延長されたガイドRNAを含む混合物又は複合体形態のリボ核酸タンパク質)を直接注入したり、或いは 3)前記細胞にデアミナーゼコーディングmRNA、RNA-ガイドヌクレアーゼコーディングmRNA及びガイドRNAの混合物又はこれらのそれぞれを直接注入して行うことができる。 前記直接注入は、前記2)のデアミナーゼ、RNA-ガイドヌクレアーゼ、及び延長されたガイドRNA(例えば、デアミナーゼ、RNA-ガイドヌクレアーゼ、及び延長されたガイドRNAを含む混合物又は複合体形態のリボ核酸タンパク質)、又は3)のデアミナーゼコーディングmRNA、RNA-ガイドヌクレアーゼコーディングmRNA及び延長されたガイドRNAが、組換えベクターを使用することなく、細胞膜及び/又は核膜を通過して遺伝体(genome)に伝達されることを意味でき、例えば、電気穿孔法、リポフェクション、微細注入(microinjection)などによって行われ得る。 本発明の他の例は、前記塩基校正方法によって校正された塩基を含む遺伝子変形細胞を提供する。前記遺伝子変形細胞は、前記塩基校正によって標的遺伝子に塩基置換、例えば単一塩基置換又は点突然変異が発生した細胞であり得る。前記細胞は真核細胞であり得る。前記真核細胞は真核動物の細胞、例えば胚細胞、及び/又は真核植物細胞であり得、一具体例において、ヒトを含む又はヒト以外の哺乳動物細胞、例えばヒトを含む又はヒト以外の哺乳動物の胚細胞、及び/又は真核植物細胞であり得る。 他の例は、塩基校正用組成物が注入された哺乳動物の胚又は前記塩基校正方法によって校正された塩基を含む遺伝子改変哺乳動物の胚を哺乳動物の卵管に移植して、遺伝子改変動物を生産する段階を含む、遺伝子改変動物の作製方法を提供する。前記遺伝子改変哺乳動物は、前記塩基校正によって標的遺伝子に塩基置換、例えば単一塩基置換又は点突然変異が発生した胚から発生した動物であり得る。 前記胚細胞が卵管に移植される哺乳動物は、前記胚細胞が由来する哺乳動物と同種の哺乳類(委託母)であり得る。 他の例は、前記遺伝子変形細胞から得られた遺伝子改変動物を提供する。前記遺伝子改変動物は、前記遺伝子改変動物の作製方法によって作製されたものであり得る。前記動物は、真核動物、例えばヒトを含む又はヒト以外の哺乳動物であり得る。 本明細書において、前記塩基校正用組成物が適用される細胞は、真核細胞、例えば、真核動物細胞であり得る。前記真核動物は、ヒトなどの霊長類、マウスなどの齧歯類を含む哺乳動物であり得る。前記真核動物細胞は哺乳動物の胚であり得る。例えば、前記胚は、過排卵誘導された雌哺乳動物(例えば、PMSG(Pregnant Mare Serum Gonadotropin)、hCG(human Choirinic Gonadotropin)などのような生殖腺ホルモン注入による過排卵誘導など)と雄哺乳動物を交配して得られた受精された胚を前記雌哺乳動物の卵管から採取したものであり得る。前記塩基校正用組成物が適用(注入)される胚は、受精された1-細胞期の胚(zygote)であり得る。 本明細書に用いられた通り、用語“塩基校正(base editing)”は、標的遺伝子内の標的部位に点突然変異(遺伝子レベル又は遺伝子レベルの点突然変異による単一アミノ酸変異など)を誘発する塩基変異(置換、欠失又は付加)を意味するものであり、少数の塩基(1つ又は2つの塩基、例えば1つの塩基)だけが変異されるという点で比較的多数の塩基の変異を伴う遺伝子校正(gene editing)と区別され得る。前記塩基校正は、遺伝子の二重鎖切断(double-stranded DNA cleavage)を伴わないものであり得る。 本明細書で提供される塩基校正用組成物又は方法によれば、ニックが形成されたDNA鎖(PAM配列が位置する鎖と反対鎖、ガイドRNAが結合(ハイブリダイズ)する鎖)の反対鎖(すなわち、PAM配列が位置する鎖)において塩基校正(塩基変形又は塩基置換;A又はCの脱アミノ化による変異)が起こり得る。通常の長さのガイドRNAを使用する場合には、例えば、PAMから5’方向に17番目のヌクレオチドにおいて塩基校正(塩基変形又は塩基置換)が起こるが、本明細書で提供される延長されたガイドRNAを使用すると、PAMから5’方向に17番目以降の部位、例えば、PAMから5’方向に18番目から30番目、18番目から25番目、又は18番目から22番目までの拡張された範囲でも塩基校正が起こり得る。 本明細書に用いられた通り、用語“塩基変異(又は塩基置換)”は、当該塩基を含むヌクレオチドに変異(例えば、置換)が起こったことを意味し、“ヌクレオチド変異(又はヌクレオチド置換)”と同じ意味で使われ得る。このような塩基変異は対立遺伝子の片方又は両方で起こり得る。 一例において、前記塩基変異又はこれを伴う塩基校正は、標的部位に終結コドンを生成させるか、野生型と異なるアミノ酸をコードするコドンを生成させることによって、標的遺伝子を不活性化(Knock-out)させるか、タンパク質を生成しない非コーディングDNA配列に変異を導入するなどの様々な形態であり得るが、これに制限されるものではない。 本発明において、前記塩基校正又は塩基変異は生体外(in vitro)又は生体内(in vivo)で行われ得る。 本明細書に用いられた通り、用語“塩基配列”は、当該塩基を含むヌクレオチドの配列を意味するものであり、ヌクレオチド配列又は核酸配列と同じ意味で使われてもよい。 本明細書に用いられた通り、‘標的遺伝子(target gene)’は塩基校正(又は塩基変異)の対象となる遺伝子を意味し、‘標的部位(target site or target region)’は、標的遺伝子内の標的特異的ヌクレアーゼによる塩基校正が起こる部位を意味し、一例として、前記標的特異的ヌクレアーゼがRNA-ガイドヌクレアーゼ(RNA-guided engineered nuclease;RGEN)を含むものである場合、標的遺伝子内のRNA-ガイドヌクレアーゼが認識する配列(PAM配列)の5’末端及び/又は3’末端に隣接して位置し、最大長が約50bp又は約40bpである遺伝子部位(二重鎖又は二重鎖のいずれか一方の鎖)を意味する。 一例において、前記標的特異的ヌクレアーゼがRNA-ガイドヌクレアーゼを含む場合、前記RNA-ガイドヌクレアーゼと共に、標的化配列を含むガイドRNAを含むことができる。前記‘標的化配列(targeting sequence)’は、標的部位内の連続する約20個のヌクレオチド(nt)を含む部位の塩基配列と相補的な塩基配列を含む(ハイブリダイズ可能な)ガイドRNAの部位であり得る。本明細書に記載された延長されたガイドRNAは、5’末端に1~10個の追加の任意のヌクレオチド(A、T、C、Gから選択される;例えば、対応標的配列と相補的配列である。)をさらに含んだり、及び/又は5’末端に1~3個の追加のマッチング又はミスマッチングのグアニンを含むことができる。前記5’末端の1~10個の追加の任意のヌクレオチドはここに該当する延長された標的DNA部位の配列と相補的配列であり得、これによって、標的部位においてPAMが5’方向に露出される単一鎖DNAの長さを伸ばして、より広い範囲で遺伝子校正(脱アミノ化)が起こるようにすることができる。 本発明において前記標的化配列と相補的な塩基配列を含む標的部位の塩基配列を‘標的配列(標的 sequence)’と称することができ、前記標的配列は、RNA-ガイドヌクレアーゼが認識するPAM配列の5’末端及び/又は3’末端に隣接して位置する連続する約20nt長の塩基配列又はその相補的鎖の該当部位を意味できる。 前記デアミナーゼは真核細胞において特定塩基からアミン基を除去する活性を有する酵素を総称するものであり、例えば、シチジンをウリジンに転換させるシチジンデアミナーゼ及び/又はアデノシンデアミナーゼであり得る。一例において前記デアミナーゼはAPOBEC (apolipoprotein B mRNA editing enzyme,catalytic polypeptidelike)酵素、AID(activation-induced deaminase)、tadA(tRNA-specific adenosine deaminase)などからなる群から選ばれる1種以上であり得るが、これに制限されるものではない。前記APOBEC1、AID、及びtadAは大腸菌などの原核動物由来、又はヒトを含む霊長類、マウスを含む齧歯類などの哺乳動物のような真核動物由来のものであり得る。 前記デアミナーゼは、タンパク質、これをコードする遺伝子(例えば、DNA又はmRNA)、又は前記遺伝子を含む組換えベクターの形態で用いられ得る。本明細書に用いられた通り、標的特異的ヌクレアーゼは、遺伝子ハサミ(programmable nuclease)とも呼ばれ、目的の遺伝体DNA上の特定位置を認識して切断(単一鎖切断又は二重鎖切断)できる全ての形態のヌクレアーゼ(例えば、エンドヌクレアーゼ)を総称する。 例えば、前記標的特異的ヌクレアーゼは、標的遺伝子の特定配列を認識し、ヌクレオチド切断活性を持ち標的遺伝子でインデル(insertion and/or deletion,Indel)を引き起こし得る全てのヌクレアーゼから選ばれた1種以上であり得る。 例えば、前記標的特異的ヌクレアーゼは微生物兔疫体系のCRISPRに由来したRGEN(RNA-guided engineered nuclease;例えば、Casタンパク質(例えば、Cas9など)、Cpf1など)などからなる群から選ばれる1種以上を含むことができるが、これに制限されるものではない。 前記標的特異的ヌクレアーゼは原核細胞、及び/又はヒト細胞をはじめとする動植物細胞(例えば、真核細胞)の遺伝体で特定塩基配列を認識して二重螺旋切断(double strand break,DSB)を起こすことができる。前記二重螺旋切断は、DNAの二重螺旋を切って、鈍端(blunt end)又は付着末端(cohesive end)を生成させることができる。DSBは細胞内で相同組換え(homologous recombination)又は非相同再接合(non-homologous end-joining,NHEJ)機序により効率的に修繕できるが、この過程で所望する変異を標的位置に導入することができる。 一具体例において、前記標的特異的ヌクレアーゼは、Casタンパク質(例えば、Cas9タンパク質(CRISPR(Clustered regularly interspaced short palindromic repeats)associated protein 9))、Cpf1タンパク質(CRISPR from Prevotella and Francisella 1)などのようなタイプII及び/又はタイプVのCRISPRシステムに伴うヌクレアーゼ(例えば、エンドヌクレアーゼ)などからなる群から選ばれる1種以上であり得る。この場合、前記標的特異的ヌクレアーゼは、遺伝体DNAの標的部位に案内するための標的DNA特異的ガイドRNAをさらに含む。前記ガイドRNAは生体外(in vitro)で転写された(transcribed)ものであり得、例えばオリゴヌクレオチド二重鎖又はプラスミド鋳型から転写されたものであり得るが、これに制限されない。前記標的特異的ヌクレアーゼは、生体外で又は生体(細胞)内に伝達後に、ガイドRNAに結合されたリボ核酸-タンパク質複合体を形成(RNAGuided Engineered Nuclease)してリボ核酸タンパク質(RNP)の形態で働くことができる。Casタンパク質はCRISPR/Casシステムの主要タンパク質構成要素であり、活性化されたエンドヌクレアーゼ又はニッカーゼを形成できるタンパク質である。 Casタンパク質又は遺伝子情報は、NCBI(National Center for Biotechnology Information)のGenBankのような公知のデータベースから得ることができる。例えば、前記Casタンパク質は、ストレプトコッカスsp.(Streptococcus sp.)、例えば、ストレプトコッカスピオゲネス(Streptococcus pyogenes)由来のCasタンパク質、例えば、Cas9タンパク質(例えば、SwissProt Accession number Q99ZW2(NP_269215.1));カンピロバクター属、例えば、カンピロバクタージェジュニ(Campylobacter jejuni)由来のCasタンパク質、例えば、Cas9タンパク質;ストレプトコッカス属、例えば、ストレプトコッカスサーモフィルス(Streptococcus thermophiles)又はストレプトコッカスアウレウス(Streptocuccus aureus)由来のCasタンパク質、例えば、Cas9タンパク質;ナイセリアメニンギティディス(Neisseria meningitidis)由来のCasタンパク質、例えば、Cas9タンパク質;パスツレラ(Pasteurella)属、例えば、パスツレラムルトシダ(Pasteurella multocida)由来のCasタンパク質、例えばCas9タンパク質;フランシセラ(Francisella)属、例えば、フランシセラノビシダ(Francisella novicida)由来のCasタンパク質、例えばCas9タンパク質などからなる群から選ばれる一つ以上であるが、これに制限されるものではない。 本発明において、Cpf1タンパク質は前記CRISPR/Casシステムとは区別される新しいCRISPRシステムのエンドヌクレアーゼであり、Cas9に比べて相対的に大きさが小さく、tracrRNAが不要であり、単一ガイドRNAによって働くことができる。また、チミン(thymine)が豊富なPAM(protospacer-adjacent motif)配列を認識し、DNAの二重鎖を切って付着末端(cohesive end;cohesive double-strand break)を生成する。 例えば、前記Cpf1タンパク質は、カンジダタス(Candidatus)属、ラクノスピラ(Lachnospira)属、ブチリビブリオ(Butyrivibrio)属、ペレグリニバクテリア(Peregrinibacteria)、アシダミノコッカス(Acidaminococcus)属、ポルフィロモナス(Porphyromonas)属、プレボテラ(Prevotella)属、フランシセラ(Francisella)属、カンジダタスメタノプラズマ(Candidatus Methanoplasma)、又はユーバクテリウム(Eubacterium)属由来のものであり得、例えば、Parcubacteria bacterium(GWC2011_GWC2_44_17)、Lachnospiraceae bacterium(MC2017)、Butyrivibrio proteoclasticus、Peregrinibacteria bacterium(GW2011_GWA_33_10)、Acidaminococcus sp.(BV3L6)、Porphyromonas macacae、Lachnospiraceae bacterium(ND2006)、Porphyromonas crevioricanis、Prevotella disiens、Moraxella bovoculi(237)、Smithella sp.(SC_KO8D17)、Leptospira inadai、Lachnospiraceae bacterium(MA2020)、Francisella novicida(U112)、Candidatus Methanoplasma termitum、Candidatus Paceibacter、Eubacterium eligensなどの微生物由来のものであり得るが、これに制限されない。 前記標的特異的ヌクレアーゼは、微生物から分離されたもの又は組換え的方法又は合成的方法などのように人為的又は非自然的生産されたもの(nonnaturally occurring)であり得る。前記標的特異的ヌクレアーゼは生体外であらかじめ転写されたmRNA又はあらかじめ生産されたタンパク質の形態、又は標的細胞又は生体内で発現するために組換えベクターに含まれた形態で用いられ得る。一例において、前記標的特異的ヌクレアーゼ(例えば、Cas9、Cpf1など)は組換えDNA(Recombinant DNA;rDNA)によって作られた組換えタンパク質であり得る。組換えDANは、様々な有機体から得られた異種又は同種の遺伝物質を含むために分子クローニングのような遺伝子組換え方法によって人工的に作られたDNA分子を意味する。例えば、組換えDNAを適切な有機体で発現させて標的特異的ヌクレアーゼを生産(in vivo又はin vitro)する場合、組換えDNAは作製しようとするタンパク質をコードするコドンのうち、前記有機体に発現するのに最適化されたコドンを選択して再構成されたヌクレオチド配列を有するものであり得る。 本明細書で用いられた前記標的特異的ヌクレアーゼは、変異された形態の変異標的特異的ヌクレアーゼであり得る。前記変異標的特異的ヌクレアーゼは、DNA二重鎖を切断するエンドヌクレアーゼ活性を喪失するように変異されたものを意味でき、例えば、エンドヌクレアーゼ活性を喪失し、ニッカーゼ活性を有するように変異された変異標的特異的ヌクレアーゼ、及びエンドヌクレアーゼ活性とニッカーゼ活性をともに喪失するように変異された変異標的特異的ヌクレアーゼの中から選ばれた1種以上であり得る。 前記変異標的特異的ヌクレアーゼがニッカーゼ活性を有するものである場合、前記デアミナーゼによる塩基転換(例えば、シチジンがウラジンに転換)と同時に又は順序に関係なく順次に、前記塩基転換が起こった鎖又はその反対鎖(例えば、塩基転換が起こった鎖の反対鎖)においてニックが導入され得る(例えば、PAMが位置する鎖の反対鎖において、PAM配列の5’末端方向に3番目ヌクレオチドと4番目ヌクレオチドとの間に該当する位置にニックが導入される)。このような標的特異的ヌクレアーゼの変異(例えば、アミノ酸置換など)は、少なくともヌクレアーゼの触媒活性ドメイン(例えば、Cas9の場合、RuvC触媒ドメイン)で起こるものであり得る。一例において、前記標的特異的ヌクレアーゼがストレプトコッカスピオゲネス由来Cas9タンパク質(SwissProt Accession number Q99ZW2(NP_269215.1))である場合、前記変異は、触媒活性を有するアスパラギン酸残基(catalytic aspartate residue;10番目位置のアスパラギン酸(D10)など)、762番目位置のグルタミン酸(E762)、840番目位置のヒスチジン(H840)、854番目位置のアスパラギン(N854)、863番目位置のアスパラギン(N863)、986番目位置のアスパラギン酸(D986)などからなる群から選ばれる一つ以上任意の他のアミノ酸に置換された突然変異を含むことができる。この時、置換される任意の他のアミノ酸はアラニン(alanine)であり得るが、これに制限されない。 他の例において、前記変異標的特異的ヌクレアーゼは、野生型Cas9タンパク質と異なるPAM配列を認識するように変異されたものであり得る。例えば、前記変異標的特異的ヌクレアーゼはストレプトコッカスピオゲネス由来Cas9タンパク質の1135番目位置のアスパラギン酸(D1135)、1335番目位置のアルギニン(R1335)、及び1337番目位置のトレオニン(T1337)のうち一つ以上、例えば3個がいずれも異なるアミノ酸に置換され、野生型Cas9のPAM配列(NGG)と異なるNGA(Nは、A、T、G、及びCの中から選ばれた任意の塩基)を認識するように変異されたものであり得る。 一例において、前記変異標的特異的ヌクレアーゼは、ストレプトコッカスピオゲネス由来Cas9タンパク質のアミノ酸配列のうち、 (1)D10、H840、又はD10+H840; (2)D1135、R1335、T1337、又はD1135+R1335+T1337;又は (3)(1)及び(2)残基の両方、でアミノ酸置換が起こったものであり得る。 本明細書に用いられた通り、前記‘他のアミノ酸’は、アラニン、イソロイシン、ロイシン、メチオニン、フェニルアラニン、プロリン、トリプトファン、バリン、アスパラギン、システイン、グルタミン、グリシン、セリン、トレオニン、チロシン、アスパラギン酸、グルタミン酸、アルギニン、ヒスチジン、リシン、前記アミノ酸の公知された全ての変形体のうち、野生型タンパク質が元来の変異位置に有するアミノ酸以外のアミノ酸の中から選ばれたアミノ酸を意味する。一例において、前記‘他のアミノ酸’は、アラニン、バリン、グルタミン、又はアルギニンであり得る。 一例において、前記変異標的特異的ヌクレアーゼは、エンドヌクレアーゼ活性を喪失(例えば、ニッカーゼ活性を有するか、エンドヌクレアーゼ活性及びニッカーゼ活性をともに喪失)した変形Cas9タンパク質、又は野生型Cas9と異なるPAM配列を認識するものであり得る。例えば、前記変形Cas9タンパク質は、ストレプトコッカスピオゲネス(Streptococcus pyogenes)由来のCas9タンパク質において、 (1)D10又はH840位置に突然変異(例えば、他のアミノ酸への置換)が導入されてエンドヌクレアーゼ活性を喪失しニッカーゼ活性を有する変形Cas9、又はストレプトコッカスピオゲネス(Streptococcus pyogenes)由来のCas9タンパク質に、D10及びH840位置にともに突然変異(例えば、他のアミノ酸への置換)が導入されてエンドヌクレアーゼ活性及びニッカーゼ活性をともに喪失した変形Cas9タンパク質; (2)D1135、R1335及びT1337の一つ以上又はこれら全部に突然変異(例えば、他のアミノ酸への置換)が導入されて野生型と異なるPAM配列を認識する変形Cas9タンパク質;又は (3)(1)及び(2)の突然変異がともに導入されてニッカーゼ活性を有し、野生型と異なるPAM配列を認識するか、エンドヌクレアーゼ活性及びニッカーゼ活性をともに喪失し、野生型と異なるPAM配列を認識する変形Cas9タンパク質であり得る。 例えば、前記CAs9タンパク質のD10位置における突然変異は、D10A突然変異(Cas9タンパク質のアミノ酸のうち10番目アミノ酸であるDがAに置換された突然変異を意味する;以下、Cas9に導入された突然変異は同じ方法で表記される。)であり得、前記H840位置における突然変異はH840A突然変異であり得、D1135、R1335、及びT1337位置における突然変異はそれぞれ、D1135V、R1335Q、及びT1337Rであり得る。 本明細書において、“ヌクレアーゼ”とは、特に言及がない限り、前述した、例えば、Cas9、Cpf1などのような“標的特異的ヌクレアーゼ”を意味する。 前記ヌクレアーゼは、微生物から分離されたもの又は組換え的方法又は合成的方法などのように人為的又は非自然的生産されたもの(non-naturally occurring)であり得る。一例において、前記ヌクレアーゼ(例えば、Cas9、Cpf1など)は組換えDNAによって作られた組換えタンパク質であり得る。組換えDAN(Recombinant DNA;rDNA)は、様々な有機体から得られた異種又は同種の遺伝物質を含むために分子クローニングのような遺伝子組換え方法によって人工的に作られたDNA分子を意味する。例えば、組換えDNAを適切な有機体に発現させてタンパク質(ヌクレアーゼ)を生産(in vivo又はin vitro)する場合、組換えDNAは、作製しようとするタンパク質をコードするコドンのうち、前記有機体に発現するのに最適化されたコドンを選択して再構成されたヌクレオチド配列を有するものであり得る。 前記ヌクレアーゼは、タンパク質、これをコードする核酸分子(例えば、DNA又はmRNA)、ガイドRNAと結合したリボ核酸タンパク質、前記リボ核酸タンパク質をコードする核酸分子、又は前記核酸分子を含む組換えベクターの形態で用いられ得る。 前記デアミナーゼ及びヌクレアーゼ、及び/又はそれらをコードする核酸分子は、核内に伝達、作用、及び/又は核内で発現し得る形態であり得る。 前記デアミナーゼ及びヌクレアーゼは細胞内に導入し易い形態であり得る。一例として、前記デアミナーゼ及びヌクレアーゼは、細胞浸透ペプチド及び/又はタンパク質伝達ドメイン(protein transduction domain)と連結され得る。前記タンパク質伝達ドメインは、ポリアルギニン又はHIV由来のTATタンパク質であり得るが、これに制限されない。細胞浸透ペプチド又はタンパク質伝達ドメインは前記記述された例の他にも様々な種類が当業界に公知であり、当業者は前記例に制限されることなく様々な例を適用することができる。 また、前記デアミナーゼ及びヌクレアーゼ、及び/又はこれらをコードする核酸分子は核位置信号(nuclear localization signal,NLS)配列又はこれをコードする核酸配列をさらに含むことができる。したがって、前記デアミナーゼコーディング核酸分子及び/又はヌクレアーゼコーディング核酸分子を含む発現カセットは、前記デアミナーゼ及び/又はヌクレアーゼを発現させるためのプロモーター配列などの調節配列、及び任意に、NLS配列(CCCAAGAAGAAGAGGAAAGTC:配列番号61)をさらに含むことができる。前記NLS配列は当業界によく知られている。 前記デアミナーゼ及びヌクレアーゼ、及び/又はこれらをコードする核酸分子は、分離及び/又は精製のためのタグ又は該タグをコードする核酸配列と連結され得る。一例として、前記タグは、Hisタグ、Flagタグ、Sタグなどのような小さいペプチドタグ、GST(Glutathione S-transferase)タグ、MBP(Maltose binding protein)タグなどからなる群から適切に選択され得るが、これに制限されない。 また、本明細書に用いられた塩基校正用組成物は、ウラシルDNAグリコシラーゼ抑制剤(uracil DNA glycosylase inhibitor:UGI)又はこれをコードする遺伝子(コーディングDNAを含む組換えベクター形態又は生体外転写されたmRNA形態など)をさらに含むことができる。前記塩基校正用組成物がウラシルDNAグリコシラーゼ抑制剤をさらに含む場合、これを含まない場合と比較して、デアミナーゼによる特定塩基置換(例えば、シトシンデアミナーゼによるCからTへの置換)の比率が高くなり、ウラシルDNAグリコシラーゼ抑制剤をさらに含まない場合には、特定塩基置換(例えば、シトシンデアミナーゼによるCからTへの置換)以外の形態の塩基置換比率が高くなる(すなわち、様々な形態の塩基置換が起こる)。 本発明において、用語“ガイドRNA(guide RNA)”は、標的遺伝子における標的部位内の特異的な塩基配列(標的配列)にハイブリダイズ可能な標的化配列を含むRNAを意味し、生体外(in vitro)又は生体(又は細胞)内でCasタンパク質、Cpf1などのようなヌクレアーゼと結合してこれを標的遺伝子(又は標的部位)に導く役割を担う。前記ガイドRNAは、複合体を形成するヌクレアーゼの種類及び/又はその由来微生物によって適切に選択され得る。 例えば、前記ガイドRNAは、 標的配列とハイブリダイズ可能な部位(標的化配列)を含むCRISPR RNA(crRNA); Casタンパク質、Cpf1などのようなヌクレアーゼと相互作用する部位を含むトランス活性化(trans-activating)crRNA(tracrRNA);及び 前記crRNA及びtracrRNAの主要部位(例えば、標的化配列を含むcrRNA部位及びヌクレアーゼと相互作用するtracrRNAの部位)が融合された形態の単一ガイドRNA(single guide RNA;sgRNA)からなる群から選ばれる1種以上であり得、 具体的にCRISPR RNA(crRNA)及びトランス活性化(trans-activating)crRNA(tracrRNA)を含む二重RNA(dual RNA)、又はcrRNA及びtracrRNAの主要部位を含む単一ガイドRNA(sgRNA)であり得る。 前記sgRNAは、標的遺伝子(標的部位)内の標的配列と相補的な配列(標的化配列)を有する部分(これを、スぺーサ領域(Spacer region)、標的DNA認識配列(Target DNA recognition sequence)、塩基対合領域(base pairing region)などとも命名する。)及びCasタンパク質結合のためのヘアピン(hairpin)構造を含むことができる。より具体的に、標的遺伝子内の標的配列と相補的な配列(標的化配列)を含む部分、Casタンパク質結合のためのヘアピン構造、及び終了(Terminator)配列を含むことができる。前述された構造は5’から3’への順に順次存在するものであり得るが、これに制限されない。前記ガイドRNAがcrRNA及びtracrRNAの主要部分及び標的DNAの相補的な部分を含む場合であればいかなる形態のガイドRNAも本発明で使用可能である。 例えば、Cas9タンパク質は、標的遺伝子校正のために2つのガイドRNA、すなわち、標的遺伝子の標的部位とハイブリダイズ可能なヌクレオチド配列を有するCRISPR RNA(crRNA)、及びCas9タンパク質と相互作用するトランス活性化(trans-activating)crRNA(tracrRNA;Cas9タンパク質と相互作用する。)を必要とし、これらのcrRNA及びtracrRNAは互いに結合した二重鎖crRNA:tracrRNA複合体の形態、又はリンカーを介して連結されて単一ガイドRNA(single guide RNA;sgRNA)の形態で用いられ得る。一例において、由来のCas9タンパク質を使用する場合、sgRNAは、少なくとも前記crRNAのハイブリダイズ可能なヌクレオチド配列を含むcrRNAの一部又は全部と前記Cas9のtracrRNAのCas9タンパク質と相互作用する部位を少なくとも含むtracrRNAの一部又は全部とがヌクレオチドリンカーを介してヘアピン構造(ステムループ(stem-loop)構造)を形成するものであり得る(この時、ヌクレオチドリンカーがループ構造に該当し得る。)。 前記ガイドRNA、具体的にcrRNA又はsgRNAは、標的遺伝子内標的配列と相補的な配列(標的化配列)を含み、crRNA又はsgRNAのアップストリーム部位、具体的にsgRNA又はdualRNAのcrRNAの5’末端に1つ以上、例えば、1~10個、1~5個、又は1~3個の追加のヌクレオチドを含むことができる。前記追加のヌクレオチドはグアニン(guanine,G)であり得るが、これに制限されるものではない。 他の例において、前記ヌクレアーゼがCpf1である場合、前記ガイドRNAはcrRNAを含むものであり得、複合体を形成するCpf1タンパク質の種類及び/又はその由来微生物にしたがって適切に選択され得る。 前記ガイドRNAの具体的配列は、ヌクレアーゼ(Cas9又はCpf1)の種類(すなわち、由来微生物)にしたがって適切に選択でき、これは、この発明の属する技術分野における通常の知識を有する者には容易に分かる事項である。 一例において、標的特異的ヌクレアーゼとしてストレプトコッカスビオゲネス由来のCas9タンパク質を使用する場合、sgRNAは次の一般式1で表現され得る: 一例において、前記ガイドRNAは次の一般式1で表現され得る: 5’-(Ncas9)l-(GUUUUAGAGCUA)-(オリゴヌクレオチドリンカー)-(UAGCAAGUUAAAAUAAGGCUAGUCCGUUAUCAACUUGAAAAAGUGGCACCGAGUCGGUGC(配列番号60)-3’ (一般式1) 前記一般式1において、 (Ncas9)lは、Ncas9が標的遺伝子(target gene)の標的部位(target site)上に結合(ハイブリダイズ)する標的化配列であり、その核酸配列は前記標的部位の配列によって決定され(すなわち、標的部位の配列とハイブリダイズ可能な配列である。)、lが前記標的化配列に含まれたヌクレオチド数を示すものであって、20であり得、5’-末端から最初の核酸は標的部位配列とマッチングであるグアニン(Gで表示;標的部位の対応位置がシトシン(C)である場合)又はミスマッチングであるグアニン(gで表示;標的部位の対応位置がシトシン(C)でない場合)であり; 前記オリゴヌクレオチドリンカーは、3~5個、例えば4個のヌクレオチドを含むものであり得、前記ヌクレオチドは互いに同一でも異なってもよく、A、U、C及びGからなる群からそれぞれ独立して選択され得る。 例えば、Ncas9が総20個のヌクレオチドからなる場合、X20(Xに続く数字は任意のヌクレオチド(X:A、T、C、及びGから選択)の個数を示す。)と表示したり、5’-末端から最初の核酸にマッチングされるグアニンが位置する場合にはGX19と表示され、5’-末端から最初の核酸にミスマッチングされるグアニンが位置する場合にはgX19と表示され得る。 前記sgRNAは3’末端に5個~7個のウラシル(U)を含む終結部位をさらに含むことができる。 前記延長されたガイドRNAは、前述した一般式1のsgRNAの5’末端に1~10個のヌクレオチドをさらに含むことができる。前記さらに含まれるヌクレオチドはそれぞれ独立してA、T、C、及びGの中から選択され得る。このとき、さらに含まれるヌクレオチドは、標的DNA配列の該当の位置(延長された位置)のヌクレオチドと相補的な配列を有するものであり得る。 また、前記sgRNAは5’末端に1~3個のグアニン(G)をさらに含むことができる。このとき、さらに含まれるグアニンはそれぞれ独立して標的配列の該当の位置のヌクレオチドと相補的(マッチング)であるか、非相補的(ミスマッチング)であり得る。 このように、前述した一般式1のsgRNA、例えば、X20、GX19、又はgX19と比較して、5’末端に1~3個のグアニン(G)をさらに含んだり及び/又はsgRNA又はsgRNAの5’末端に1~10個のヌクレオチド(それぞれ独立してA、T、C、及びGの中から選択され得る。)をさらに含む延長されたsgRNA形態である場合に塩基校正頻度及び/又は効率が増加し、より広範囲な部位で塩基校正が起こり得る。 前記ガイドRNAの標的配列は、標的DNA上のPAM(Protospacer Adjacent Motif)配列(S.pyogenes Cas9の場合、5’-NGG-3’(NはA、T、G、又はC))が位置する鎖又はその反対鎖(相補的鎖)においてPAMの5’に隣接して位置する20個の連続する核酸配列であり得る。 前記ガイドRNAの標的配列とハイブリダイズ可能なガイドRNAの標的化配列は、前記標的配列が位置するDNA鎖(すなわち、PAM配列(5’-NGG-3’(NはA、T、G、又はCである。)が位置するDNA鎖又はその反対鎖)の相補的な鎖のヌクレオチド配列と50%以上、60%以上、70%以上、80%以上、90%以上、95%以上、99%以上、又は100%の配列相補性を有するヌクレオチド配列を意味するものであり、前記相補的鎖のヌクレオチド配列と相補的結合が可能である。 本明細書において、標的部位の核酸配列は標的遺伝子の該当の遺伝子部位の2本のDNA鎖のうち、PAM配列が位置する鎖の核酸配列で表示される。このとき、実際にガイドRNAが結合するDNA鎖はPAM配列が位置する鎖の相補的鎖であるので、前記ガイドRNAに含まれた標的化配列は、RNA特性上、TをUに変更する他は、標的部位の配列と同じ核酸配列を有する。したがって、本明細書において、ガイドRNAの標的化配列と標的部位の配列(又は、切断部位の配列)はTとUが相互変更される他は、同じ核酸配列で表示される。 前記ガイドRNAはRNA形態で使用される(又は、前記組成物に含まれる)か、或いはこれを暗号化するDNAを含むプラスミドの形態で使用され得る(或いは、前記組成物に含まれ得る)。 実施例 以下、実施例を用いて本発明をより詳細に説明する。これらの実施例は単に本発明をより具体的に説明するためのものであり、本発明の要旨によって本発明の範囲がこれらの実施例によって制限されないということは当業界における通常の知識を有する者にとって明らかであろう。 実施例1:sgRNA長による塩基校正範囲の変化試験 HEK293T細胞株においてそれぞれの活性をディープシークエンシングを用いて測定した。その結果を図2a~図2fに示した。 図2aは、HEK2部位においてsgRNA長によるABE7.10置換活性を塩基位置別に示すものである。図2bは、GX19 sgRNAを使用した時と比較して相対的な置換活性[gX20~30活性/GX19活性]を示すものである。図2cは、最も頻繁に現れる突然変異対立遺伝子を表示したものであり、WT配列において変異が導入された部分を赤色で表した。図2dは、HBB部位においてsgRNA長によるBE3置換活性を塩基位置別に示したものである。図2eは、GX19 sgRNAを使用した時と比較して相対的な置換活性[gX20~30活性/GX19活性]を示したものである。図2fは、最も頻繁に現れる突然変異対立遺伝子を表示したものであり、WT配列において変異が導入された部分を赤色で表した。GX19 sgRNAを使用した時に効率よく作動する位置として知られた塩基校正範囲を空色で表示した。 実施例2:追加的なミスマッチGを1個又は2個を含むsgRNAを使用した時に塩基校正範囲の変化試験 HEK293T細胞株においてそれぞれの活性をディープシークエンシングを用いて測定して得られた結果を図3に示した。 sgRNA長によるBE3置換活性を塩基位置別にFANCF部位(図3a)とHBB部位(図3c)で確認した。GX19 sgRNAを使用した時と比較して相対的な置換活性[gX20~30活性/GX19活性]をFANCF部位(図3b)とHBB部位(図3d)において示した。 実施例3:4個の個別の部位においてsgRNA長による塩基校正範囲の変化試験 4個の個別の部位でsgRNA長による塩基校正範囲の変化を試験し、その結果を図4a及び図4bに示した。 4個の部位でGX19 sgRNAを使用した時と比較して相対的なABE7.10の置換活性[gX20~30活性/GX19活性]を確認し、その結果を図4aに示した。GX19 sgRNAを使用した時と比較して相対的なBE3の置換活性[gX20~30活性/GX19活性]を確認し、その結果を図4bに示した。GX19 sgRNAを使用した時に効率よく作動する位置として知られた塩基校正範囲を空色で表示した。HEK293T細胞株においてそれぞれの活性をディープシークエンシング方法で測定した。 実施例4:油彩と豆においてsgRNA形態による塩基校正範囲の変化試験 真核植物の代表として油彩と豆においてsgRNA形態による塩基校正範囲の変化を試験し、その結果を図5a~図5dに示した。 それぞれの活性はディープシークエンシングを用いて分析した。 油彩のプロトプラストにおいてgX19 sgRNA及びgX20 sgRNAをAID2シトシン塩基校正遺伝子ハサミと共に使用した時、シトシン位置による置換効率を測定してその結果を図5aに示した。 sgRNA形態によって最も頻繁に現れる突然変異が導入された対立遺伝子の変化を図5bに示した。gX20 sgRNAを使用した時にのみTAG終止コドンが作られることが確認できた。 豆のプロトプラストにおいてgX19 sgRNA及びgX20 sgRNAをAID2シトシン塩基校正遺伝子ハサミと共に使用した時、シトシン位置による置換効率を測定して図5cに示した。sgRNA形態によって最も頻繁に現れる突然変異が導入された対立遺伝子の変化を図5dに示した。同様に、gX20 sgRNAを使用した時にのみTAG終止コドンが作られることが確認できた。 実施例5:マウスにおいてsgRNA形態による塩基校正範囲の変化試験 真核動物の代表としてマウスにおいてsgRNA形態による塩基校正範囲の変化を試験し、その結果を図6a及び図6bに示した。 マウスの胚に種々のsgRNAと共にABE 7.10 mRNAを微細注入した後、胚盤胞段階からディープシークエンシングによって置換活性を分析し、その結果を図6aに示した。 GX21 sgRNAを使用してABE 7.10 mRNAと共に胚に微細注入を行って得た仔マウスを分析した結果、図6bに示した通り、所望のH420R突然変異を持つ3匹の仔マウスを得ることができた。 本発明によれば、デアミナーゼを使用した遺伝子塩基校正において、通常のガイドRNAに比べて延長された形態の延長されたガイドRNAを使用することによって、塩基校正頻度及び/又は効率を増進させることができ、このような技術を適用して所望の点突然変異を効果的に誘導することができる。 以上、本発明内容の特定の部分を詳細に述べたところ、当業界における通常の知識を有する者にとって、このような具体的記述は単に好ましい実施態様であるだけで、これによって本発明の範囲が制限されない点は明らかであろう。したがって、本発明の実質的な範囲は添付の請求項とそれらの等価物によって定義されるといえよう。
| 특허 상태 | 등록 |
| 출원인 | 기초과학연구원 |
| 발명자 | ジンス キム, ガヨン リム, ボンチャン カン, ソクミン リュ |
| 출원번호 | 2020561562 |
| 출원일 | 2019.01.23 |
| 등록번호 | 7075170B |
| 등록일 | 2022.05.25 |
| 중요 키워드 | basesequencesgrnatargetgene |
| 출원번호 | 출원일 |
| 1020207021532 | 2019.01.23 |
| 종류코드 | |
| A | |
| 외부 링크 | |
| 출원번호 | 출원일 |
| 201980014548 | 2019.01.23 |
| 종류코드 | |
| A | |
| 외부 링크 | |
| 출원번호 | 출원일 |
| 19743145 | 2019.01.23 |
| 종류코드 | |
| A4 | |
| 외부 링크 | |
| 출원번호 | 출원일 |
| 201916964277 | 2019.01.23 |
| 종류코드 | |
| B2 | |
| 외부 링크 | |
| 출원번호 | 출원일 |
| 2019000962 | 2019.01.23 |
| 종류코드 | |
| A1 | |
| 외부 링크 | |