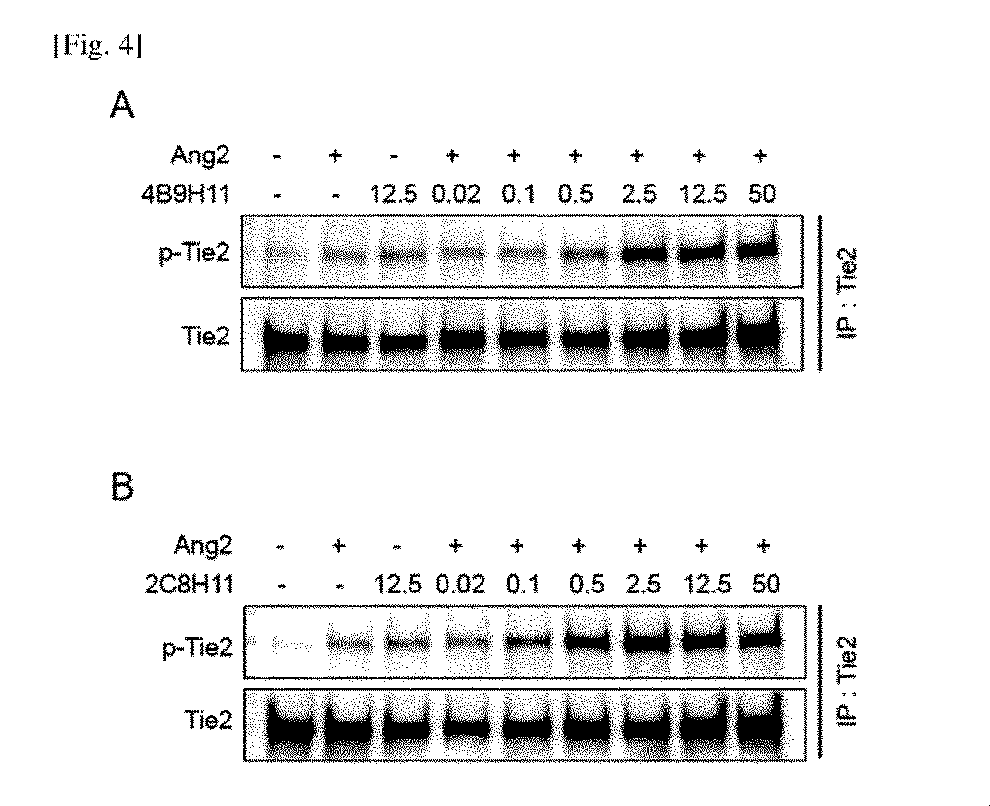
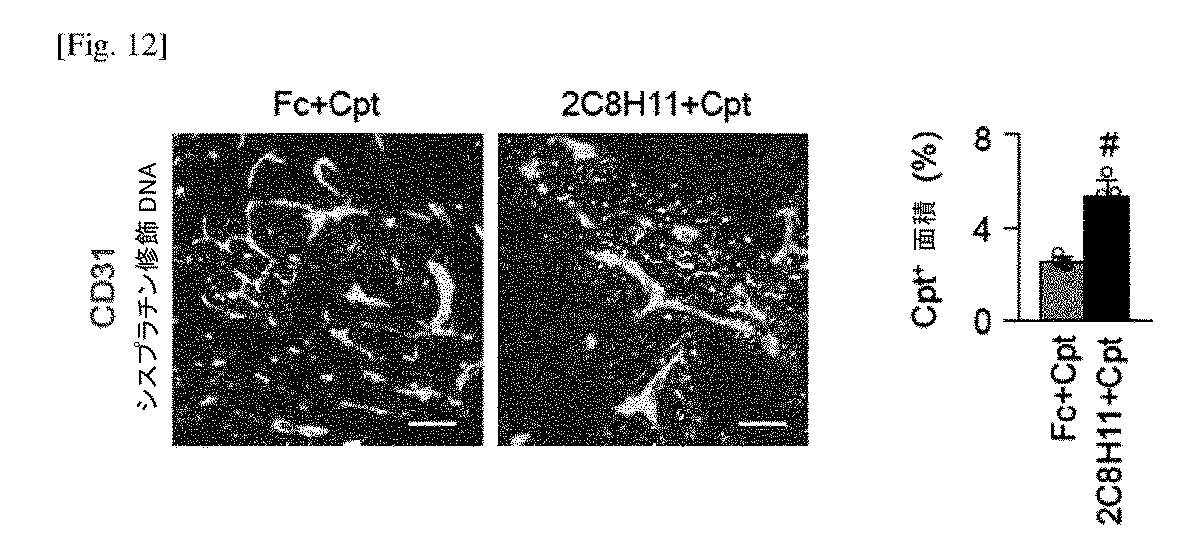
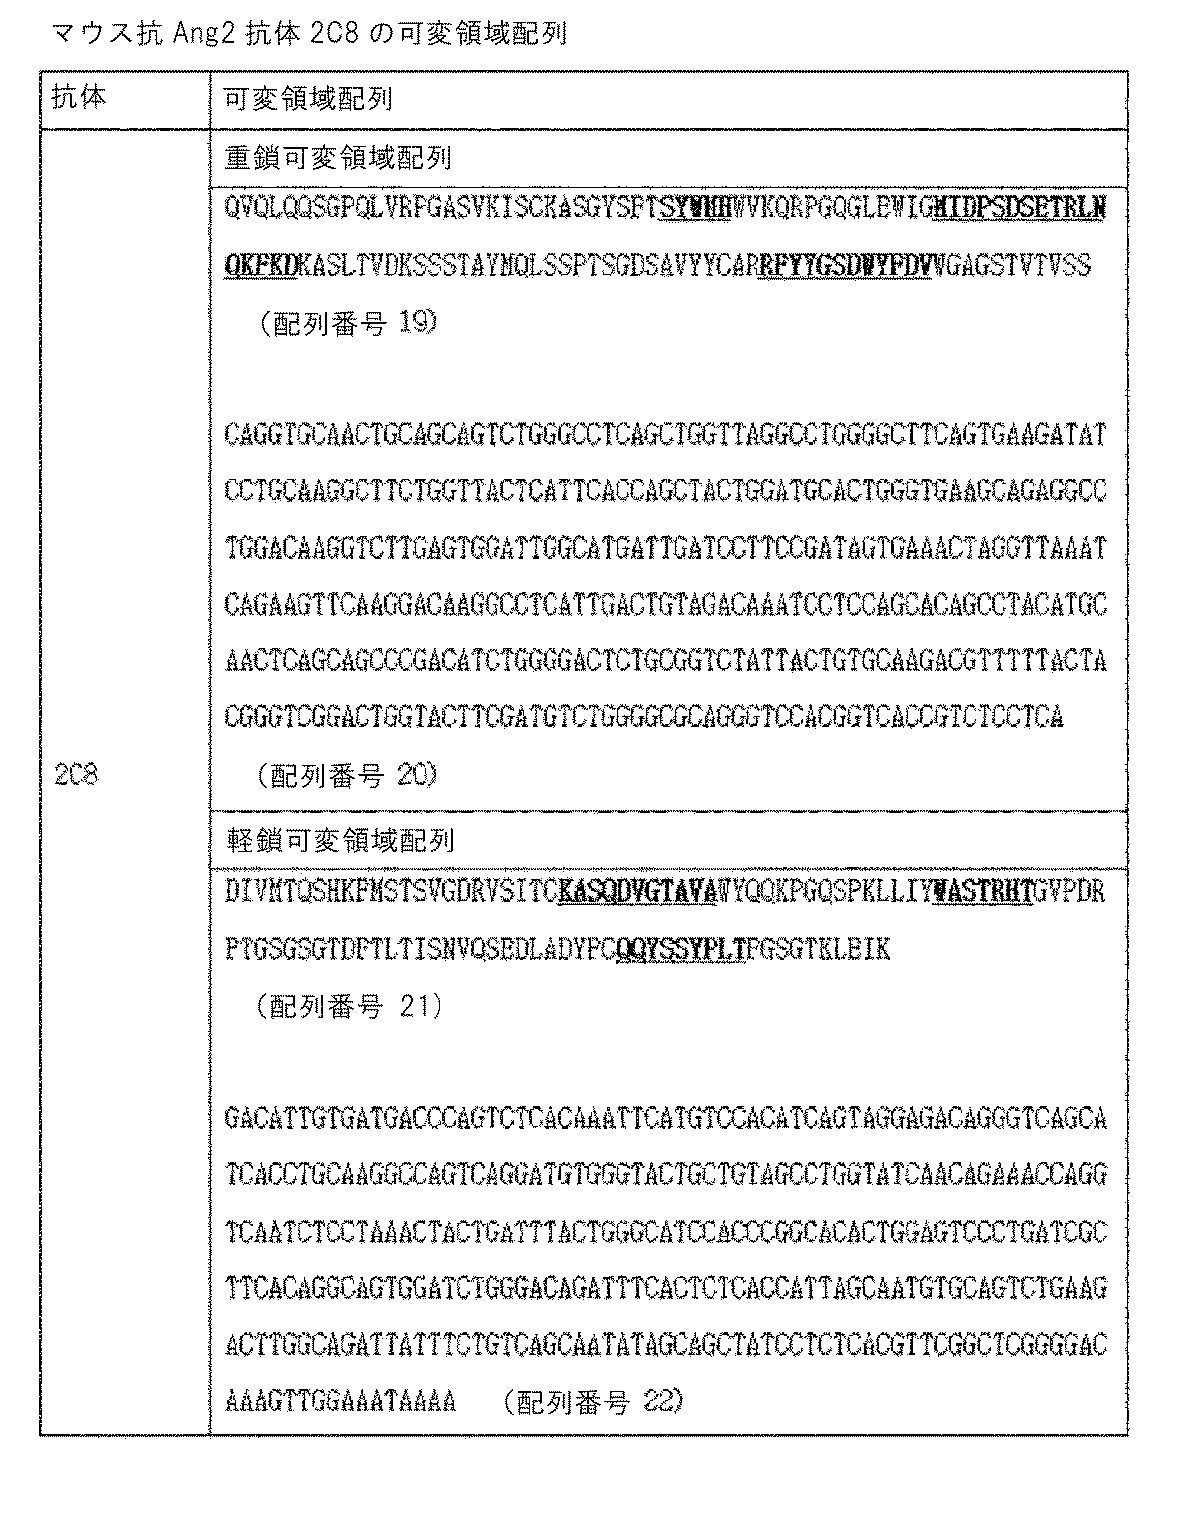
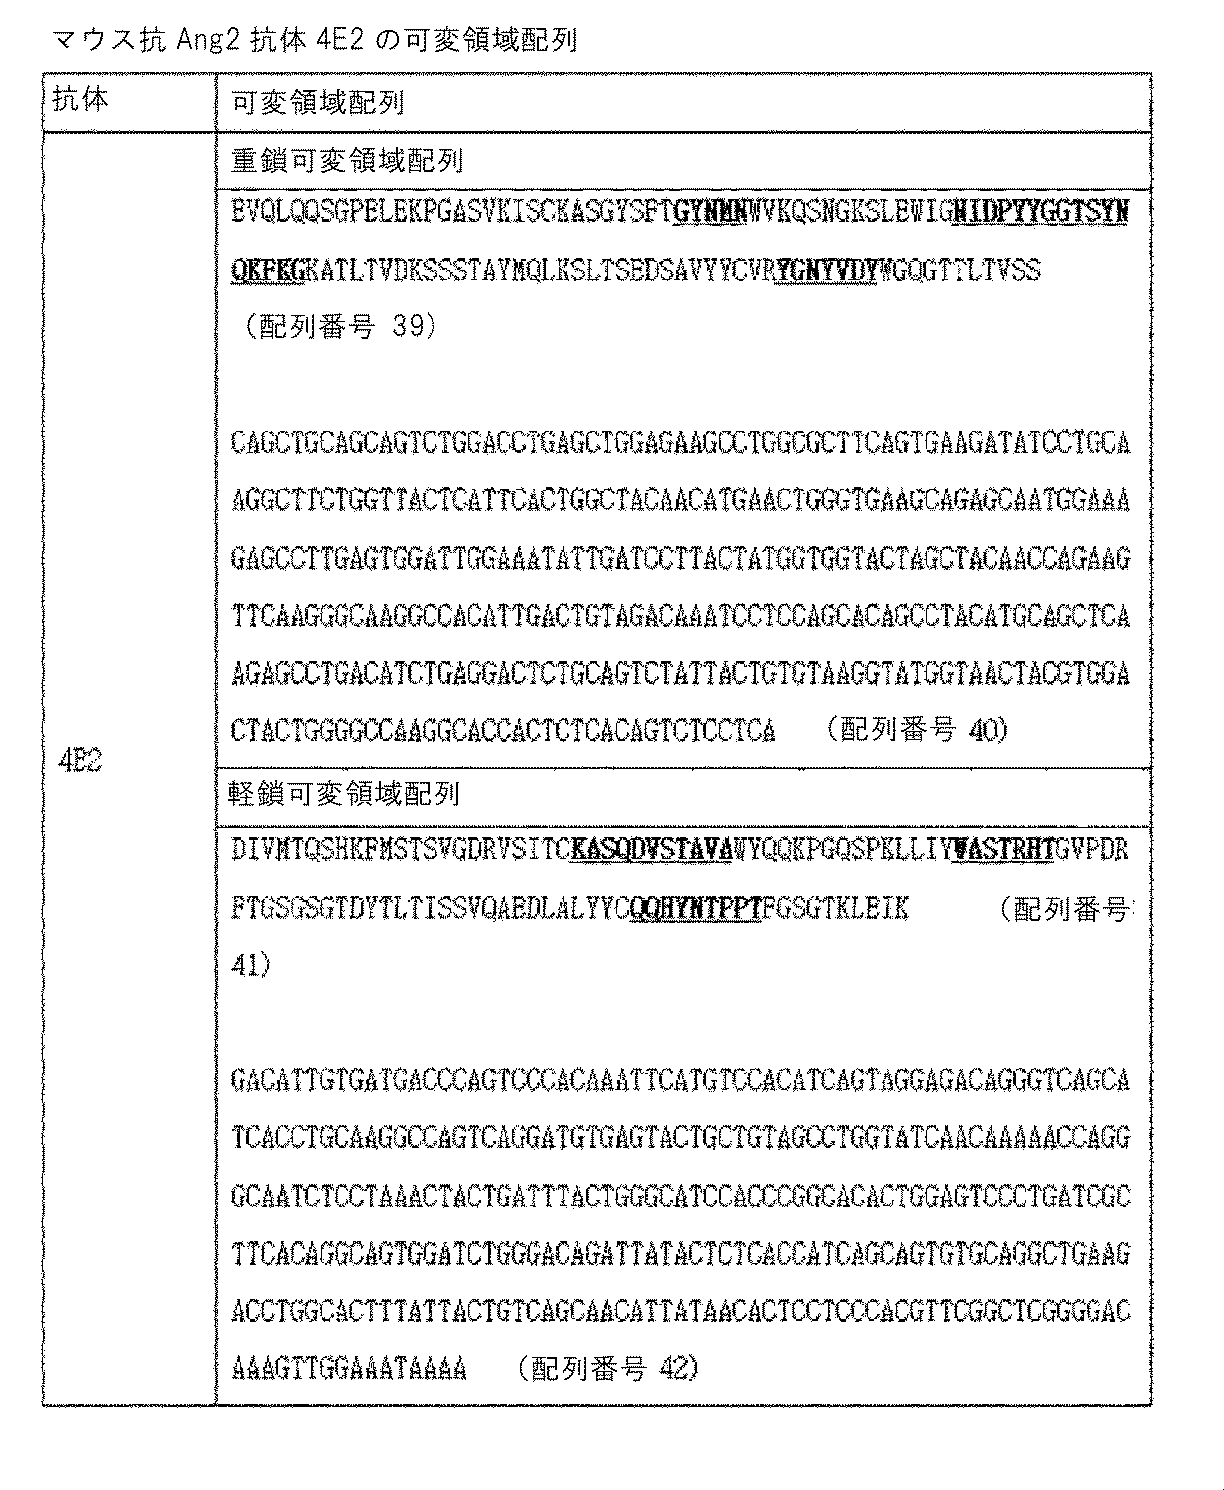
[특허 요약] KCLRF KCLRF-BP-00417 KCLRF KCLRF-BP-00418 本発明は、血管形成および維持を調節するリガンドとして知られるアンジオポエチン2(Ang2)に特異的に結合する、抗Ang2抗体またはその抗原結合フラグメント、それを含む医薬組成物、それをコードする核酸、核酸を含むベクター、ベクターを含む宿主細胞、ならびに抗体またはその抗原結合フラグメントを生産する方法を包含する。 生物の発達、成長、維持およびホメオスタシスにおいて、血管形成はさまざまな調節因子によってダイナミックに起こる。このプロセスにおいて新たに形成される血管は、周辺の細胞において、栄養物、酸素およびホルモンといったさまざまな生体材料の輸送チャネルとして機能する。機能的および構造的に異常な血管は、さまざまな疾患の発症および進行の、直接的または間接的な原因となる。腫瘍血管は、その機能的および構造的欠陥の故に低酸素を悪化させ、その結果、腫瘍の進行および他組織への転移を引き起こし、また、腫瘍塊中心部への抗癌剤デリバリーの低下をもたらす。血管の欠陥は、癌に加え、さまざまな他の疾患および状態においても見られる。その例としては、さまざまな、眼疾患(例えば、糖尿病黄斑浮腫、滲出型加齢黄斑変性)、ウイルス感染、および急性炎症反応、例えば敗血症が挙げられる。したがって、異常な血管を正常化することのできる処置剤が利用可能であれば、血管異常を有するさまざまな患者の処置に適用することができる。 アンジオポエチンファミリーは、血管の形成および維持において重要な役割を担い、4つのアンジオポエチン(Ang1、Ang2、Ang3およびAng4)からなる。アンジオポエチン1(Ang1)は、血管内皮細胞表面上に存在するTie2受容体に結合して、Tie2受容体をリン酸化および活性化し、それによって血管を安定化する。一方、アンジオポエチン2(Ang2)は、Tie2受容体に結合するが、アンタゴニストとして作用し、Tie2受容体の不活性化を誘導し、それによって血管の不安定化および血管の漏出をもたらす。癌患者、眼疾患、ウイルスおよび細菌感染ならびに炎症性疾患において血液中のAng2の発現レベルが非常に高いことが報告されている(Saharinen P et al., 2017, Nature Review Drug Discovery)。しかしながら、Ang2はまた、リンパのチューブ形成および維持を包含するいくつかのプロセスにおいて、Tie2受容体の活性化を誘導するアゴニストとして作用することが知られており、したがって、Ang2は状況によってさまざまな機能を示すと考えられる。 Ang2結合抗体がいくつかの文献に報告されている(例えば米国特許第7658924号および米国特許第8987420号)。これまでに報告されたAng2抗体の多くが、Ang2のTie2への結合を阻害し、したがって、そのようなAng2中和効果によって新血管の形成を阻害することがわかっている。現在、さまざまなAng2抗体がさまざまな癌患者に対する臨床試験に付されているが、その抗癌作用は不十分であることがわかっている。例えば、Amgenが実施した第3相臨床試験により、Ang2抗体の卵巣癌患者における抗癌作用は有意ではないことが示された(Marth C et al., 2017, Eur. J. Cancer)。 抗体に加え、Tie2受容体に直接結合してTie2のリン酸化および活性化を誘導する組換えタンパク質も報告されている。その例には、COMP-Ang1(Cho et al., 2004, PNAS)、および5つのアンジオポエチン1タンパク質フラグメントからなるVasculotide(David S et al., 2011, Am J Physiol Lung Cell Mol Physiol)ペプチドがある。しかしながら、これらのタンパク質は半減期が非常に短く、不安定な物理化学的性質を有すると考えられる。さらに、リン酸化されたTie2からリン酸基を除去してTie2を不活性化するVE-PTPと称されるホスファターゼが存在し、VE-PTP酵素の活性を阻害することによって間接的にTie2活性を維持する低分子化合物(AKB-9778)の開発もなされている(Goel S, 2013, J Natl Cancer Inst)。しかしながら、この化合物は、Tie2に加え、他の受容体も活性化するという欠点を有する(Frye M, 2015, J Exp. Med, Hayashi M, 2013, Nature Communication, Mellberg S et al., 2009, FASEB J.)。 本発明は、ヒトアンジオポエチン2に特異的に結合しTie2活性化を誘導する、抗体またはその抗原結合フラグメントに関し、該抗体またはその抗原結合フラグメントは、水素/重水素交換法による決定で、配列番号1のアミノ酸289~299、配列番号1のアミノ酸316~322、または配列番号1のアミノ酸336~353に結合する。 抗体またはその抗原結合フラグメントは、ヒトおよびマウスのAng2に結合しうる。抗体はポリクローナルまたはモノクローナルでありうる。抗原結合フラグメントはscFvまたはFabでありうる。抗体またはそのフラグメントはヒト化されうる。 他の一態様において、本発明は、 (a)配列番号3のHCDR1アミノ酸配列、配列番号4のHCDR2アミノ酸配列、および配列番号5のHCDR3アミノ酸配列を有する重鎖可変領域の相補性決定領域(CDR);および (b)配列番号6のLCDR1アミノ酸配列、配列番号7のLCDR2アミノ酸配列、および配列番号8のLCDR3アミノ酸配列を含む軽鎖可変領域のCDR を含む、抗体または抗原結合フラグメントに関する。 他の一態様において、本発明は、 (a)配列番号13のHCDR1アミノ酸配列、配列番号14のHCDR2アミノ酸配列、および配列番号15のHCDR3アミノ酸配列を有する重鎖可変領域の相補性決定領域(CDR);および (b)配列番号16のLCDR1アミノ酸配列、配列番号17のLCDR2アミノ酸配列、および配列番号18のLCDR3アミノ酸配列を含む軽鎖可変領域のCDR を含む、抗体または抗原結合フラグメントに関する。 一態様において、本発明は、受託番号KCLRF-BP-00417またはKCLRF-BP-00418で寄託された細胞株から産生される抗体の相補性決定領域(CDR)を含む、抗体またはその抗原結合フラグメントに関する。 他の一態様において、本発明は、薬学的に有効な量の前記抗体またはその抗原結合フラグメントを、薬学的に許容しうる担体と共に含む医薬組成物に関する。医薬組成物は、化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストをさらに含みうる。一態様において、VEGFアンタゴニストは、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤でありうる。 他の一態様において、本発明は、前記抗体またはその抗原結合フラグメントを含む医薬組成物を患者に投与することを含む、患者において腫瘍増殖を抑制する方法に関する。該方法は、本発明の抗体またはそのフラグメントの投与と同時に、または前後して、化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストを投与することをさらに含みうる。VEGFアンタゴニストは、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤でありうる。 他の一態様において、本発明は、前記医薬組成物を眼疾患患者に投与することを含む、該患者において脈絡膜血管新生を抑制する、眼血管漏出を抑制する、または同時に脈絡膜毛細血管再生を促進する方法に関する。該方法は、本発明の抗体またはそのフラグメントの投与と同時に、または前後して、化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストを投与することをさらに含みうる。VEGFアンタゴニストは、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤でありうる。眼疾患は、滲出型加齢黄斑変性(wAMD)、糖尿病黄斑浮腫(DME)、または糖尿病網膜症(DR)である。 上記のおよび他の本発明の課題は、後述の本発明の説明、添付の図面および特許請求の範囲から、より明確に理解されうる。 本発明は、後述の詳細な説明および添付の図面から、より明確に理解されうるが、それらは説明のためのものであるり、本発明を限定するものではない。 抗Ang2抗体によって誘導されるAktリン酸化。HUVECを6時間の血清飢餓に付し、ヒトAng2(1μg/ml)の不存在下または存在下に、COMP-Ang1(CA1、0.5μg/ml)または抗Ang2抗体(対照、2C8、4B9、2F10および4E2のそれぞれ)と共に30分間インキュベートした。細胞溶解物をSDS-PAGE/ウエスタンブロッティングに付し、ブロットを抗ホスホAkt(S473)または抗Akt抗体でプローブした。 水素/重水素交換質量分析によって分析した抗Ang2抗体のエピトープを示す図。組換えhAng2-RBD単独、またはhAng2-RBD/Ang2抗体複合体を重水素で標識した。標識したタンパク質をペプシンカラムにおいて消化し、質量分析により分析した。hAng2-RBD単独およびhAng2-RBD/Ang2抗体複合体の重水素取り込みを分析し、重水素取り込みの差を比較した。重水素取り込みの質量差が0.5~1Daを上回ったペプチドを、抗Ang2抗体との結合を仲介する特異的エピトープであると決定した。PyMolソフトウェアを用いて作製したAng2-RBD結晶構造(PDB:2GY7)の画像において、2C8エピトープ(赤)および4B9エピトープ(緑)を示した。 ヒト化抗Ang2抗体4B9H11および2C8H11による用量依存的Aktリン酸化(pAkt)。血清飢餓HUVECを、ヒトAng2、抗Ang2抗体、またはヒトAng2とさまざまな濃度の抗Ang2抗体との組み合わせと共に30分間インキュベートした。細胞溶解物をSDS-PAGE/ウエスタンブロッティングに付した。 ヒト化抗Ang2抗体4B9H11および2C8H11による用量依存的Tie2リン酸化(pTie2)。4B9H11抗体(図4A)および2C8H11抗体(図4B)のTie2リン酸化誘導能力を、免疫沈降およびウエスタンブロッティングによって調べた。血清飢餓HUVECを、ヒトAng2、抗Ang2抗体単独、またはヒトAng2とさまざまな濃度の抗Ang2抗体との組み合わせと共に30分間インキュベートした。細胞溶解物を、抗Tie2抗体による免疫沈降、次いでSDS-PAGE/ウエスタンブロッティング分析に付した。 ヒト化Ang2抗体によるTie2受容体クラスター形成およびFOXO1移行。HUVECを6時間の血清飢餓に付し、COMP-Ang1(CA1)、Ang2(A2)、またはAng2と抗Ang2抗体(対照Ab、2C8H11、または4B9H11)との組み合わせと共に30分間インキュベートした。固定後、HUVECを、DAPI(青)、抗Tie2抗体(緑)、抗FOXO1抗体(赤)および抗ヒトFc(シアン)で染色して、細胞表面におけるTie2クラスター形成、核からのFOXO1移行、および細胞間結合域におけるヒト化Ang2抗体の存在を調べた。矢尻は、細胞間接着においてクラスター形成したTie2および共局在するAng2抗体を示す。 2C8H11により誘導されるTie2受容体クラスター形成、FOXO1移行、およびHUVECの細胞間結合部におけるAng2抗体局在の経時変化。血清飢餓HUVECを、抗Ang2抗体(対照Ab、または2C8H11)と共に、10分~240分の間のさまざまな時間にわたりインキュベートした。細胞の固定後、細胞表面におけるクラスター形成したTie2受容体、およびエンドサイトーシスを受けたTie2受容体を、抗Tie2抗体での染色によって調べた。細胞表面およびサイトゾルにおけるヒト化抗Ang2抗体を、抗ヒトFc抗体でプローブした。矢尻は、細胞間接着においてクラスター形成したTie2および共局在するAng2抗体を示す。 ヒト化抗Ang2抗体による血管透過性抑制。HUVECをトランスウェルチャンバーに播種し、3日間培養した。100%のコンフルエンシーで、HUVECを、COMP-Ang1(CA1、0.5μg/ml)、Ang2(A2、1μg/ml)、Ang2と対照Ab(A2+対照Ab、1μg/ml)、Ang2と2C8H11(A2+2C8H11、1μg/ml)、またはAng2と4B9H11(A2+4B9H11、1μg/ml)で30分間処理し、その後、上部チャンバーへのTNF-a(100ng/ml)で22時間処理した。上部チャンバーにFITC-デキストランを加え、20分間インキュベートした。FITC-デキストランを上部チャンバーに20分間加えた後の下部チャンバーにおけるFITC蛍光を測定することにより、血管透過性を評価した。値は平均±SDである。一元ANOVAにより、*p<0.05、**p<0.01、***p<0.001。 ELISAによる、マウスAng2に対する抗Ang2抗体のEC50値。マウスAng2(mAng2)に対するヒト化抗Ang2抗体の結合親和性を、ELISAによるEC50の分析によって測定した。組換えmAng2をコートし、段階希釈した抗Ang2抗体4B9H11および2C8H11と共にインキュベートした。次いで、プレートを、抗ヒトIgG(Fab)-HRP二次抗体と反応させた。プレートをTMB溶液で処理し、450nmにおける吸光度を測定した。PerkinElmerのWorkoOut 2.5プログラムを用いてEC50値を分析した。 LLC腫瘍モデルにおけるヒト化2C8H11抗体およびシスプラチン(Cpt)による腫瘍増殖抑制。腫瘍移植後7日目に開始して、示されるように処置されたマウスにおけるLLC腫瘍増殖を比較した。黒の矢印は抗体の注射を示し、赤の矢印はCptの単回注射を示す。各群において、n=7~9。値は平均±SD。*Fcに対してp<0.05;#Fc+Cptに対してp<0.05。 ヒト化2C8H11抗体の腫瘍血管正常化作用。LLC皮下腫瘍モデルにおいて、腫瘍におけるPDGFRβ+ペリサイト域、および腫瘍間領域におけるCD31+BVを比較した。スケールバー:100μm。各群において、n=5。値は平均±SD。*Fcに対してp<0.05;#Fc+Cptに対してp<0.05。 ヒト化2C8H11抗体による低酸素の軽減および腫瘍血管の灌流増加。LLC腫瘍において、レクチンの腫瘍血管灌流、およびHypoxyprobe+低酸素面積を分析し比較した。Hypoxyprobe+面積は、総断面積に対するパーセンテージとして示した。スケールバー:100μm。各群において、n=5。値は平均±SD。*Fcに対してp<0.05;#Fc+Cptに対してp<0.05。 ヒト化2C8H11抗体による腫瘍内部へのCptドラッグデリバリーの増加。抗Cpt修飾DNA抗体を用いて、21日目に採取した腫瘍におけるCpt+領域を画像化した。Cpt+面積を、総断面積に対するパーセンテージとして測定した。スケールバー:100μm。各群において、n=5。値は平均±SD。#Fc+Cptに対してp<0.05。 レーザー誘発CNVモデルにおける2C8H11抗体の硝子体内注射によるCNV低減および血管漏出抑制。レーザー光凝固後7日目に、抗体の硝子体内投与を行った。レーザー光凝固後6日目および/または14日目に、CD31+CNV体積を測定し、CNV周囲の漏出面積を、FA画像において測定された高蛍光の総面積を、ICGA画像において測定された総CNV面積で除したものとして、計算した。スケールバー:100μm。各群において、n=11。値は平均±SD。***一元ANOVA、次いでスチューデント-ニューマン-ケウルスのポスト検定によりp<0.001;###対応のあるスチューデントのt検定によりp<0.001。 2C8H11抗体の硝子体内注射によるCNV低減および脈絡膜毛細血管再生。レーザー光凝固後7日目に、抗体の硝子体内投与を行った。レーザー光凝固後、6、14、21および35日目に、眼のOCTA画像によって、CNV体積(白色の点線の境界線で区切られた部分)、およびCNVの周囲の無血管スペース(黄色の点線の境界線で区切られた部分)を測定した。各群において、n=11。値は平均±SD。一元ANOVA、次いでスチューデント-ニューマン-ケウルスのポスト検定により、Fcに対して、*p<0.005、**p<0.005。 CNVの内皮細胞における2C8H11抗体およびCD31の共局在。レーザー光凝固後1日目に、2C8H11抗体の皮下投与を行った。レーザー光凝固後2、4および8日目に、CNVの内皮細胞における2C8H11抗体およびCD31共局在を、抗ヒトIgG抗体で直接に検出した。 皮下注射2C8H11抗体のCNV抑制効果。レーザー光凝固後1日目に、2C8H11抗体の皮下投与を行った。レーザー光凝固後8日目に、CD31+CNVの体積を測定した。スケールバー:100μm。各群において、n=10。値は平均±SD。***対応のないスチューデントのt検定によりp<0.001。 別の定義をしない限り、本書に使用する技術用語および科学用語はいずれも、本発明が属する技術分野の専門家に理解されるのと同じ意味を有する。全般に、本書に使用する命名法は当分野において知られ、普通に使用されるものである。 本願において、単数形の記載は、対象が単数である場合および複数である場合の両方を意味する。 一態様において、本発明は、ヒトアンジオポエチン2に特異的に結合し、Tie2活性化を誘導する、抗体またはその抗原結合フラグメントに関し、ここで、抗体またはその抗原結合フラグメントは、配列番号115のアミノ酸、配列番号116のアミノ酸、または配列番号117のアミノ酸に結合する。 配列番号115のアミノ酸は、配列番号1のアミノ酸336~353に対応し、配列番号116のアミノ酸は、配列番号1のアミノ酸289~299に対応し、配列番号117のアミノ酸配は、配列番号1のアミノ酸316~322に対応する。 本書において、用語「Ang2に特異的に結合する抗体」は、Ang2に結合し、その結果Ang2の生物学的活性を阻害する抗体をさし、「抗Ang2抗体」、「Ang2結合抗体」と互換的に使用される。 本書において「抗体」は、特定の抗原に対し免疫学的に反応性の免疫グロブリン分子であり、抗原を特異的に認識する受容体としてはたらくタンパク質分子を意味し、ポリクローナル抗体、モノクローナル抗体(単クローン抗体)、全抗体、および抗体フラグメントのいずれをも包含しうる。さらに、抗体は、キメラ抗体(例えばヒト化マウス抗体)および二価または二重特異性分子(例えば二重特異性抗体)、ディアボディ、トリアボディおよびテトラボディを包含しうる。 全抗体は、2つの完全長軽鎖および2つの完全長重鎖を有し、各軽鎖が重鎖にジスルフィド結合により連結されうるという構造を有する。全抗体はIgA、IgD、IgE、IgMおよびIgGを包含し、IgGはサブタイプであり、IgG1、IgG2、IgG3およびIgG4を包含する。 本開示において、抗体またはその抗原結合フラグメントは、ヒトおよびマウスのAng2に結合しうる。 抗体フラグメントとは、抗原結合機能を維持するフラグメントを意味し、Fab、Fab’、F(ab’)2、scFv、およびFv等を包含する。 Fabは、軽鎖および重鎖の可変領域、ならびに軽鎖定常領域および重鎖第1定常領域(CH1ドメイン)の構造を有し、1つの抗原結合部位を有する。Fab’は、重鎖CH1ドメインC末端に1つまたはそれ以上のシステイン残基を含むヒンジ領域を有する点で、Fabと異なる。F(ab’)2抗体は、Fab’のヒンジ領域のシステイン残基がジスルフィド結合することによって形成される。 Fv(可変フラグメント)とは、重鎖可変領域および軽鎖可変領域のみを有する最小の抗体フラグメントをいう。二本鎖Fv(dsFv)においては、重鎖可変領域および軽鎖可変領域がジスルフィド結合によって連結される。一本鎖Fv(scFv)においては、重鎖可変領域および軽鎖可変領域が、一般に、ペプチドリンカーを用いる共有結合によって連結される。これら抗体フラグメントは、タンパク質分解酵素を用いて得ることができ(例えば、Fabは、全抗体をパパインで限定切断することによって得ることができ、F(ab’)2フラグメントはペプシンによる切断によって得ることができる)、また、組換えDNA技術によって作製することができる(例えば、抗体重鎖またはその可変領域をコードするDNAおよび軽鎖またはその可変領域をコードするDNAを鋳型として用い、プライマー対を用いる、PCR(ポリメラーゼ連鎖反応)法による増幅、および、両端に重鎖またはその可変領域および軽鎖またはその可変領域をそれぞれ連結させるように、プライマー対のペプチドリンカーをコードするDNAを組み合わせての増幅)。 本開示において、抗体またはその抗原結合フラグメントは、ヒト化されうる。好ましくは、本発明の抗Ang2抗体は、ヒト抗体ライブラリーから選択される完全ヒト抗体でありうるが、それに限定されない。 本発明の抗体またはその抗原結合フラグメントは、配列番号3のアミノ酸配列を有する重鎖CDR1、配列番号4のアミノ酸配列を有する重鎖CDR2、配列番号5のアミノ酸配列を有する重鎖CDR3を含む重鎖可変領域;および配列番号6のアミノ酸配列を有する軽鎖CDR1、配列番号7のアミノ酸配列を有する軽鎖CDR2、配列番号8のアミノ酸配列を有する軽鎖CDR3を含む軽鎖可変領域を含むことによって特徴付けられる。 本発明の抗体またはその抗原結合フラグメントは、配列番号13のアミノ酸配列を有する重鎖CDR1、配列番号14のアミノ酸配列を有する重鎖CDR2、配列番号15のアミノ酸配列を有する重鎖CDR3を含む重鎖可変領域;および配列番号16のアミノ酸配列を有する軽鎖CDR1、配列番号17のアミノ酸配列を有する軽鎖CDR2、配列番号18のアミノ酸配列を有する軽鎖CDR3を含む軽鎖可変領域を含むことによって特徴付けられる。 本発明において、抗体またはその抗原結合フラグメントは、配列番号9、19、43、47、51、55、59、63、67、71、75、79、83、87、91、95、99、103、107または111のアミノ酸配列を含む重鎖可変領域;および配列番号11、21、44、48、52、56、60、64、68、72、76、80、84、88、92、96、100、104、108または112のアミノ酸配列を含む軽鎖可変領域を含むことによって特徴付けられるが、それに限定されない。 抗体のアミノ酸配列は、保存的置換によって置換されうる。「保存的置換」とは、少なくとも1つのアミノ酸の、同様の生化学的性質を有するアミノ酸による置換を含む、ポリペプチドの対応するポリペプチドへの、生物学的または生化学的機能の低下を伴わない改変をいう。「保存的アミノ酸置換」とは、アミノ酸残基が同様の側鎖を有するアミノ酸残基で置換される置換をいう。同様の側鎖を有するアミノ酸残基の群は、当分野において定義されている。そのような群は、塩基性側鎖を有するアミノ酸(例えば、リジン、アルギニン、ヒスチジン)、酸性側鎖を有するアミノ酸(例えば、アスパラギン酸、グルタミン酸)、荷電していない極性側鎖を有するアミノ酸(例えば、グリシン、アスパラギン、グルタミン、セリン、スレオニン、チロシン、システイン)、非極性側鎖を有するアミノ酸(例えば、アラニン、バリン、ロイシン、イソロイシン、プロリン、フェニルアラニン、メチオニン、トリプトファン)、β分枝側鎖を有するアミノ酸(例えば、スレオニン、バリン、イソロイシン)、および芳香族側鎖を有するアミノ酸(例えば、チロシン、フェニルアラニン、トリプトファン、ヒスチジン)を包含する。本発明の抗体は、保存的アミノ酸置換がなされても活性を維持することができると考えられる。 本発明において、抗体またはその抗原結合フラグメントは、受託番号KCLRF-BP-00417またはKCLRF-BP-00418で寄託された細胞株から産生される抗体の相補性決定領域(CDR)を含むことによって特徴付けられる。 本発明の抗Ang2抗体の配列は、本願において提示される配列とは異なっていてよい。例えば、アミノ酸配列は、上記に示したアミノ酸配列とは次のように異なりうる:(a)軽鎖の定常ドメインから可変領域が切り離されうる;(b)アミノ酸が上記に示したものと、該残基の化学的性質への著しい影響はないが異なりうる(いわゆる保存的置換);(c)アミノ酸が上記に示したものと、あるパーセンテージ、例えば80%、85%、90%、91%、92%、93%、94%、95%、96%、97%、98%または99%の相同性で異なりうる。あるいは、抗体をコードする核酸は、(a)軽鎖の定常ドメインから切り離されうる;(b)上記に示したものと、コードする残基を変更することなく異なりうる;または(c)上記に示したものと、あるパーセンテージ、例えば70%、75%、80%、85%、90%、91%、92%、93%、94%、95%、96%、97%、98%または99%の相同性で異なりうる。 アミノ酸配列において保存的変異を導入する際、アミノ酸のハイドロパシーインデックスを考慮しうる。タンパク質に生物学的相互作用機能を付与する際のアミノ酸ハイドロパシーインデックスの重要性は、当分野で一般に理解されている。アミノ酸の相対的なハイドロパシーは、得られるタンパク質の二次構造に影響し、それがタンパク質と他の分子、例えば酵素、基質、受容体、DNA、抗体、抗原等との相互作用を決定付けると認識されている。 また、同様のアミノ酸による置換は、親水性に基づいて効果的になされうることが当分野で理解されている。例えば、隣接するアミノ酸の親水性によって決まる、タンパク質の最大の局部的平均親水性が、タンパク質の生物学的性質に影響する。アミノ酸が、同様の親水性を有する他のアミノ酸で置換され、生物学的または免疫学的に改変されたタンパク質をもたらしうることが理解される。そのような変異において、親水性値が±2以内のアミノ酸の置換が好ましく、±1以内のものが特に好ましく、±0.5のものがより一層好ましい。 上述のように、アミノ酸置換は一般に、アミノ酸側鎖置換基、例えばその疎水性、親水性、荷電性、大きさ等の相対的類似性に基づく。前記のさまざまな性質を考慮した置換の例は当業者に知られており、以下のものを包含する:アルギニンおよびリジン:グルタメートおよびアスパルテート;セリンおよびスレオニン:グルタミンおよびアスパラギン;ならびにバリン、ロイシンおよびイソロイシン。 他の一態様において、本発明は、抗体またはその抗原結合フラグメントを有効成分として含む医薬組成物に関する。 医薬組成物は、薬学的に有効な量の本発明の抗体またはその抗原結合フラグメント、および薬学的に許容しうる担体を含むことによって特徴付けられる。 医薬組成物は、化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストをさらに含みうる。一態様において、VEGFアンタゴニストは、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤でありうる。 他の一態様において、本発明は、抗体またはその抗原結合フラグメントを有効成分として含む、眼疾患を予防または治療するための医薬組成物に関する。 他の一態様において、本発明は、前記医薬組成物を眼疾患患者に投与することを含む、該患者において脈絡膜血管新生を抑制する、眼血管漏出を抑制する、または同時に脈絡膜毛細血管再生を促進する方法に関する。 眼疾患を予防または治療するための医薬組成物は、化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストをさらに含みうる。VEGFアンタゴニストは、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤でありうる。 前記方法は、本発明の抗体またはそのフラグメントの投与と同時に、または前後して、化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストを投与することをさらに含みうる。VEGFアンタゴニストは、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤でありうる。 抗Ang2抗体またはその抗原結合フラグメントは、Ang2の機能を阻害することによって異常な血管形成を抑制する機能を有し、したがって、血管異常が関与する眼疾患を予防または治療する作用を有する。 本書において、用語「予防する」とは、本発明の組成物の投与による、眼疾患を防ぐ、またはその進行を遅延する任意の作用をいい、用語「治療する」、「処置する」とは、眼疾患を防ぐ、軽減する、またはその発現を抑制することをいう。 本発明において、眼疾患は、滲出型加齢黄斑変性(wAMD)、糖尿病黄斑浮腫(DME)、または糖尿病網膜症(DR)であるが、それに限定されない。 本書において、用語「黄斑変性」とは、血管新生が異常に増加し、それによって黄斑に損傷が起こり視力が損なわれる状態をさす。黄斑変性は主に50歳を超える年齢で起こり、非滲出型(ドライ型)または滲出型(ウェット型)に分けられる。特に滲出型のAMDの場合、失明に至りうる。AMDの原因は未だ解明されていないが、年齢;および喫煙、高血圧、肥満、遺伝的素因、過度のUV暴露、低い血清抗酸化物質濃度等を包含する環境的要因がリスク因子であることがわかっている。 本書において、用語「黄斑浮腫」とは、網膜の黄斑の腫脹をさし、これは網膜血管からの液体漏出によって起こる。弱い血管壁からの漏出血液が、色覚に係る神経の終末であり網膜錐体が豊富な網膜黄斑の限局域に入る。そして、中心窩右または中心窩中央への像が不鮮明となる。視力が何箇月かにわたって徐々に低下する。本書において、用語「糖尿病網膜症」とは、糖尿病により引き起こされる末梢循環障害による網膜微小循環の障害によって視力が低下する、眼の合併症をいう。初期には視力障害は軽度であるが、最終的に失明に至りうる。糖尿病網膜症は1型糖尿病または2型糖尿病のいずれの患者にも起こりうる。 本発明は、処置有効量の抗Ang2抗体、および薬学的に許容しうる担体を含む医薬組成物を提供する。「薬学的に許容しうる担体」とは、製剤の調製または安定化を促進するために活性成分に添加することができ、患者に顕著な有害毒性作用をもたらさない材料である。 担体とは、患者に刺激を与えず、投与される化合物の生物学的活性および特性を阻害しない担体または希釈剤をさす。液体溶液として調製される組成物における薬学的に許容しうる担体は、無菌であり、生体に対して適当なものである。食塩液、無菌水、リンガー液、緩衝食塩液、アルブミン注射用溶液、デキストロース溶液、マルトデキストリン溶液、グリセロール、エタノールを担体として使用し得るか、またはその少なくとも1つの成分を混合して使用し得、他の通常の添加剤、例えば抗酸化剤、緩衝剤、殺菌剤等を必要に応じて添加し得る。さらに、組成物は、希釈剤、分散剤、界面活性剤、結合剤および滑沢剤のさらなる添加によって、注射用製剤、例えば水溶液、懸濁液、エマルジョン等、丸薬、カプセル剤、顆粒剤または錠剤に調製し得る。他の担体は、例えばRemington's Pharmaceutical Sciences (E. W. Martin) に記載されている。組成物は、少なくとも1つの抗Ang2抗体を処置有効量で含み得る。 薬学的に許容しうる担体は、無菌水溶液または分散液、および無菌注射用溶液または分散液の用時調製用の無菌粉末を包含する。医薬活性物質にそのような媒体および物質を使用することは、当分野で知られている。組成物は好ましくは、非経口注射用に調製される。組成物は、溶液、マイクロエマルジョン、リポソーム、または高薬物濃度に適当な他の処方構造物として調製されうる。担体は、例えば、水、エタノール、ポリオール(例えば、グリセロール、プロピレングリコールおよび液体ポリエチレングリコール等)およびその適当な混合物を含む溶媒または分散媒でありうる。いくつかの態様において、組成物は、等張化剤、例えば糖、ポリアルコール、例えばマンニトール、ソルビトール、または塩化ナトリウムを含みうる。無菌注射用溶液は、必要量の活性化合物を、前記成分の1つまたはその組み合わせと共に適当な溶媒中に組み合わせ、その後必要に応じて滅菌マイクロ濾過することによって調製しうる。一般に、分散液は、ベースの分散媒体および前記成分から選択される他の必要成分を含む無菌ビヒクル中に活性化合物を組み合わせることによって調製される。無菌注射用溶液の調製用の無菌粉末は、活性成分粉末および任意の所望の追加成分の粉末を、予め滅菌濾過した溶液から減圧乾燥および凍結乾燥することによって得られる。 医薬組成物は、患者の重篤度によって異なりうる用量および頻度で、経口的または非経口的に投与しうる。組成物は、必要に応じて、ボーラスとして、または連続注入によって、患者に投与しうる。例えば、Fabフラグメントとして供される本発明の抗体のボーラス投与は、0.0025~100mg/kg体重、0.025~0.25mg/kg、0.010~0.10mg/kg、または0.10~0.50mg/kgの量でありうる。連続注入のためには、Fabフラグメントとして供される本発明の抗体は、0.001~100mg/kg/分、0.0125~1.25mg/kg/分、0.010~0.75mg/kg/分、0.010~1.0mg/kg/分、または0.10~0.50mg/kg/分で、1~24時間、1~12時間、2~12時間、6~12時間、2~8時間、または1~2時間にわたって投与されうる。完全な定常領域を有する全長抗体として供される本発明の抗体が投与される場合、投与量は、およそ1~10mg/kg体重、2~8mg/kg、または5~6mg/kgでありうる。全長抗体は典型的には、30分間~35分間にわたる注入によって投与される。投与頻度は、状態の重篤度による。投与頻度は、毎週3回ないし1週間または2週間に1回でありうる。 さらに、組成物は、皮下注射によって患者に投与されうる。例えば、投与量10~100mgの抗Ang2抗体が、1週間、2週間または1箇月毎に、患者に皮下注射により投与されうる。 本書において、「処置有効量」とは、医学的処置に適用可能な妥当なベネフィット/リスク比で疾患を処置するのに十分な量、および抗Ang2抗体の組み合わせの量を意味する。正確な量は、処置用組成物の成分および物理的性質、意図される患者集団、個々の患者について考慮すべき条件等を包含するがそれに限定されない多くの因子によって異なり得、当業者によって容易に決定され得る。それら因子をすべて考慮するとき、副作用を伴わずに最大の効果を得るのに十分な最小量を投与することが重要であり、該用量は当業者によって容易に決定され得る。 本発明の医薬組成物の用量は、特に限定されず、患者の健康状態および体重、疾患重篤度、薬物の種類、投与経路ならびに投与時間を包含するさまざまな因子に応じて変更される。組成物は、ラット、マウス、ウシ、ヒト等を包含する哺乳動物において通常許容される経路で、例えば経口、直腸、静脈内、皮下、子宮内または脳血管内に、単回投与または1日当たりの多回投与として投与され得る。 他の一態様において、本発明は、抗体またはその抗原結合フラグメントを活性成分として含む、癌を予防または治療するための医薬組成物に関する。 他の一態様において、本発明は、前記の抗体または抗原結合フラグメントを含む医薬組成物を患者に投与することを含む、患者における腫瘍増殖抑制および癌処置のための方法に関する。該方法は、本発明の抗体またはそのフラグメントの投与と同時に、または前後して、化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストを投与することをさらに含みうる。VEGFアンタゴニストは、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤でありうる。 本書において、用語「癌」または「腫瘍」は典型的には、制御されない細胞成長/増殖によって特徴付けられる哺乳動物の生理学的状態をいう。 本発明の組成物で処置することのできる癌は、特に限定されず、固形癌および血液癌の両方を包含する。そのような癌の例は、扁平上皮癌、小細胞肺癌、非小細胞肺癌、肺腺癌、肺扁平上皮癌、腹膜癌、皮膚癌、皮膚または眼のメラノーマ、直腸癌、肛門癌、食道癌、小腸癌、内分泌癌、副甲状腺癌、副腎癌、軟部組織肉腫、尿道癌、慢性または急性白血病、リンパ腫、肝細胞癌、消化器癌、膵臓癌、神経膠腫、子宮頸癌、卵巣癌、肝臓癌、膀胱癌、肝腫瘍、乳癌、結腸癌、子宮内膜または子宮癌、唾液腺癌、腎臓癌、前立腺癌、外陰癌、甲状腺癌、頭頸部癌、脳腫瘍、骨肉腫等を包含するが、それに限定されない。 癌を予防または治療するための組成物は抗Ang2抗体を含み、その構成は、眼疾患を予防または治療するための組成物に含まれる組成と同様であり、したがってその各構成の記述は、癌を予防または治療するための組成物にも同様に適用される。 本願は、本書に記載される抗Ang2抗体を、化学療法もしくは放射性療法の介入または他の処置と組み合わせて使用することをも意図する。特に、抗Ang2抗体を、Ang2の機能の異なる側面を標的とする他の処置と組み合わせることも有効であることが示され得る。 他の一態様において、本発明の抗体は、診断または処置剤としての抗体分子の効果を高めるために、少なくとも1つの物質と連結されて抗体コンジュゲートを形成しうる。 本発明の他の一態様において、本発明は抗体またはその抗原結合フラグメントをコードする核酸に関する。 本書において、核酸は、細胞、細胞溶解物中に存在するものであり得、または部分的に精製された形態もしくは実質的に純粋な形態で存在するものであり得る。核酸は、アルカリ/SDS処理、CsClバンド形成、カラムクロマトグラフィー、アガロースゲル電気泳動および当分野で知られる他の技術を包含する標準的な方法で、他の細胞成分または他の汚染物、例えば他の細胞核酸またはタンパク質から精製されているとき、「単離されている」または「実質的に純粋である」。本発明の核酸は、例えばDNAまたはRNAであり得、イントロン配列を含むかまたはイントロン配列を含まないものであり得る。 本発明の他の一態様において、本発明は、核酸を含む組換え発現ベクターに関する。 抗体またはそのフラグメントの発現のために、標準的な分子生物学的技術(例えば、PCR増幅、または標的抗体を発現するハイブリドーマを用いるcDNAクローニング)によって、部分長または完全長を有する軽鎖および重鎖をコードするDNAを得ることができ、DNAを、発現ベクターに挿入されるように、転写および翻訳調節配列に「作動可能に結合」することができる。 本書において、用語「作動可能に結合」するとは、抗体遺伝子がベクター中に、ベクター中の転写および翻訳調節配列が抗体遺伝子の転写および翻訳を調節する意図される機能を持つようにライゲートされることをさしうる。発現ベクターおよび発現調節配列は、使用する発現用宿主細胞との適合性を持つように選択される。抗体の軽鎖遺伝子および抗体の重鎖遺伝子は、別個のベクターに挿入されるか、または同じ発現ベクターに挿入される。抗体は、標準的な方法(例えば、抗体遺伝子フラグメントおよびベクター上の相補的制限酵素部位のライゲーション、または制限酵素部位が全く存在しない場合は、平滑末端ライゲーション)によって発現ベクターに挿入される。いくつかの態様において、組換え発現ベクターは、宿主細胞からの抗体鎖の分泌を促進するシグナルペプチドをコードしうる。抗体鎖遺伝子は、シグナルペプチドが抗体鎖遺伝子のアミノ末端にフレームにしたがって結合するように、ベクター中にクローン化されうる。シグナルペプチドは、免疫グロブリンシグナルペプチドまたは異種シグナルペプチド(すなわち免疫グロブリン以外のタンパク質に由来するシグナルペプチド)でありうる。さらに、組換え発現ベクターは、宿主細胞における抗体鎖遺伝子の発現を制御する調節配列を有する。「調節配列」は、プロモーター、エンハンサー、および抗体鎖遺伝子の転写または翻訳を制御する他の発現調節エレメント(例えば、ポリアデニル化シグナル)を包含しうる。当業者は、発現ベクターのデザインは、形質転換する宿主細胞の種類、タンパク質の発現レベル等といった因子に応じた調節配列の変更によって変わりうることを認識することができる。 他の一態様において、本発明は、組換え発現ベクターが導入された細胞に関する。 本開示の抗体を生産するために使用する細胞は、原核生物、酵母、またはより高等な真核生物の細胞でありうるが、それに限定されない。 特に、バチルス属の株、例えば大腸菌、枯草菌およびバチルス・チューリンゲンシス(Bacillus tuligensis)、ストレプトミセス属の株、シュードモナス属の株(例えばシュードモナス・プチダ(Pseudomonas putida))、ならびに原核生物宿主細胞株、例えばプロテウス・ミラビリス(Proteus mirabilis)、およびスタフィロコッカス属の株(例えばスタフィロコッカス・カルノーサス(Staphylococcus carnosus))を使用することができる。 動物細胞の関心が最も高く、有用な宿主細胞株の例は、以下のものを包含するが、それに限定されない:COS-7、BHK、CHO、CHOK1、DXB-11、DG-44、CHO/-DHFR、CV1、COS-7、HEK293、BHK、TM4、VERO、HELA、MDCK、BRL 3A、W138、Hep G2、SK-Hep、MMT、TRI、MRC 5、FS4、3T3、RIN、A549、PC12、K562、PER.C6、SP2/0、NS-0、U20S、またはHT1080。 核酸またはベクターは、宿主細胞にトランスフェクトされる。「トランスフェクション」のために、原核生物宿主細胞または真核生物宿主細胞に外来核酸(DNAまたはRNA)を導入する、一般に用いられるさまざまな種類の技術、例えば電気泳動、リン酸カルシウム沈殿、DEAE-デキストラントランスフェクション、リポフェクション等を用いうる。本発明の抗体は、哺乳動物細胞への適用可能性を考慮して、真核生物細胞において、好ましくは、哺乳動物宿主細胞において発現されうる。抗体の発現に適当な哺乳動物宿主細胞は、例えばチャイニーズハムスター卵巣(CHO)細胞(例えば、DHFR選択マーカーと共に用いられるdhfr-CHO細胞を包含する)、NSOミエローマ細胞、COS細胞またはSP2細胞等を包含しうる。 他の一態様において、本発明は、抗Ang2抗体またはその抗原結合フラグメントを生産する方法であって、宿主細胞を培養し、抗体またはその抗原結合フラグメントを発現させることを含む方法に関する。 抗体遺伝子をコードする組換え発現ベクターを哺乳動物宿主細胞に導入する場合、宿主細胞を、抗体が宿主細胞中で発現されるのに十分な時間培養することによって、より好ましくは、抗体が宿主細胞が培養される培養培地中に分泌されるのに十分な時間培養することによって、抗体を生産しうる。 いくつかの態様において、発現された抗体は、宿主細胞から分離され、均一に精製されうる。抗体の分離または精製は、タンパク質に一般に用いられる分離方法、精製方法、例えばクロマトグラフィーによって実施されうる。クロマトグラフィーは、例えば、プロテインAカラムおよびプロテインGカラムを含む、アフィニティークロマトグラフィー、イオン交換クロマトグラフィー、または疎水性クロマトグラフィーを包含しうる。クロマトグラフィーに加えて、濾過、限外濾過、塩析、透析等をさらに組み合わせて、抗体を分離および精製しうる。 本発明の態様をさらに記載する: [項1] ヒトアンジオポエチン2に特異的に結合しTie2活性化を誘導する、抗体またはその抗原結合フラグメントであって、抗体またはその抗原結合フラグメントが、配列番号115のアミノ酸、配列番号116のアミノ酸、または配列番号117のアミノ酸に結合する、抗体またはその抗原結合フラグメント。 [項2] 抗体またはその抗原結合フラグメントが、配列番号116のアミノ酸、または配列番号117のアミノ酸に結合する、上記項1に記載の抗体またはその抗原結合フラグメント。 [項3] 抗体またはその抗原結合フラグメントが、配列番号115のアミノ酸に結合する、上記項1に記載の抗体またはその抗原結合フラグメント。 [項4] 抗体またはその抗原結合フラグメントが、ヒトおよびマウスのAng2に結合する、上記項1に記載の抗体またはその抗原結合フラグメント。 [項5] 抗体が、ポリクローナルまたはモノクローナルである、上記項1に記載の抗体またはその抗原結合フラグメント。 [項6] 抗原結合フラグメントが、scFvまたはFabである、上記項1に記載の抗体またはその抗原結合フラグメント。 [項7] 抗体がヒト化されている、上記項1に記載の抗体またはその抗原結合フラグメント。 [項8] (a)配列番号3のHCDR1アミノ酸配列、配列番号4のHCDR2アミノ酸配列、および配列番号5のHCDR3アミノ酸配列を有する重鎖可変領域の相補性決定領域(CDR);および (b)配列番号6のLCDR1アミノ酸配列、配列番号7のLCDR2アミノ酸配列、および配列番号8のLCDR3アミノ酸配列を含む軽鎖可変領域のCDR を含む、上記項1に記載の抗体または抗原結合フラグメント。 [項9] (a)配列番号13のHCDR1アミノ酸配列、配列番号14のHCDR2アミノ酸配列、および配列番号15のHCDR3アミノ酸配列を有する重鎖可変領域の相補性決定領域(CDR);および (b)配列番号16のLCDR1アミノ酸配列、配列番号17のLCDR2アミノ酸配列、および配列番号18のLCDR3アミノ酸配列を含む軽鎖可変領域のCDR を含む、上記項1に記載の抗体または抗原結合フラグメントに関する。 [項10] 配列番号9、19、43、47、51、55、59、63、67、71、75、79、83、87、91、95、99、103、107または111からなる群から選択される重鎖可変領域;および 配列番号11、21、44、48、52、56、60、64、68、72、76、80、84、88、92、96、100、104、108または112からなる群から選択される軽鎖可変領域 を含む、上記項1に記載の抗体または抗原結合フラグメント。 [項11] 受託番号KCLRF-BP-00417またはKCLRF-BP-00418で寄託された細胞株から産生される抗体の相補性決定領域(CDR)を含む、上記項1に記載の抗体または抗原結合フラグメント。 [項12] 薬学的に有効な量の上記項1に記載の抗体またはその抗原結合フラグメントを、薬学的に許容しうる担体と共に含む医薬組成物。 [項13] 化学療法に用いられる低分子阻害剤をさらに含む、上記項12に記載の医薬組成物。 [項14] 血管内皮増殖因子(VEGF)アンタゴニストをさらに含む、上記項12に記載の医薬組成物。 [項15] VEGFアンタゴニストが、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤である、上記項14に記載の医薬組成物。 [項16] 患者において腫瘍増殖を抑制する方法であって、上記項12に記載の抗体または抗原結合フラグメントを含む医薬組成物を患者に投与することを含む、方法。 [項17] 化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストを投与することをさらに含む、上記項16に記載の方法。 [項18] VEGFアンタゴニストが、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤である、上記項17に記載の方法。 [項19] 眼疾患患者において、脈絡膜血管新生を抑制する、眼血管漏出を抑制する、または同時に脈絡膜毛細血管再生を誘導する方法であって、上記項12に記載の医薬組成物を患者に投与することを含む、方法。 [項20] 化学療法に用いられる低分子阻害剤、または血管内皮増殖因子(VEGF)アンタゴニストを投与することをさらに含む、上記項19に記載の方法。 [項21] VEGFアンタゴニストが、抗VEGF抗体、VEGF阻害融合タンパク質、または低分子キナーゼ阻害剤である、上記項20に記載の方法。 [項22] 眼疾患が、滲出型加齢黄斑変性(wAMD)、糖尿病黄斑浮腫(DME)、または糖尿病網膜症(DR)である、上記項19に記載の方法。 [項23] 上記項1に記載の抗体またはその抗原結合フラグメントをコードする核酸。 [項24] 上記項23に記載の核酸を含む発現ベクター。 [項25] 上記項24に記載の発現ベクターが導入された宿主細胞。 [項26] 上記項25に記載の宿主細胞を培養することを含む、抗Ang2抗体またはその抗原結合フラグメントを生産する方法。 以下、下記実施例を参照して本発明をより詳細に説明する。しかしながら、下記実施例は単に本発明を説明するためのものであり、当業者には、本発明の範囲が実施例に限定されると解釈されるものでないことは明らかであろう。 マウスモノクローナル抗Ang2抗体の調製 1-1:ヒトAng2によるマウスの免疫 抗原としての使用のために、ヒトAng2(hAng2、配列番号2)の受容体結合ドメイン(RBD)を、CMVプロモーターを含むベクター中にクローン化し、HEK293F細胞株へのトランスフェクションによって一過性に発現させた。5日間のインキュベーション後、発現された組換えヒトAng2-RBDをアフィニティーカラムによって精製した。精製したヒトAng2-RBD(100μg/注射)をアジュバントと混合したものによって、5週齢のBALB/cマウスを1週間に2回、6週間にわたり免疫した。免疫したマウスの血清における抗Ang2抗体価を、hAng2 ELISAによって調べた。抗体価(1:5000希釈)が適度に上昇したら(OD>1.0)、免疫マウスから脾臓を摘出し、そこからBリンパ球を単離し、培養したミエローマ細胞(SP2/0)と融合した。融合細胞を、ヒポキサンチン、アミノプテリンおよびチミジンを含むHAT培地中で培養し、そこから、ミエローマ細胞とBリンパ球の融合物のみからなるハイブリドーマ細胞を選択し、培養した。生き延びたハイブリドーマ細胞を96ウェルプレートに播種し、培養上清をhAng2 ELISAによって試験した。陽性シグナルを示したハイブリドーマのプールを、限界希釈によるクローン選別のために選択した。最終的に、約50のモノクローナルハイブリドーマ株を確立した。そのなかで、いくつかのAng2結合性抗体がTie2活性化活性を示した。Tie2活性化レベルおよびヒトAng2に対する高親和性に基づいて候補抗体を選択し、後でヒト化のために処理した。 1-2:マウスモノクローナル抗Ang2抗体の生産および精製 ELISA陽性反応に基づいて選択した抗Ang2抗体を生産するために、ハイブリドーマ細胞を、T75フラスコ(面積75cm2)において10%FBS含有DMEM(ダルベッコ改変イーグル培地)中で培養した。細胞コンフルエンシーが約90%に達したら、細胞をPBSで洗い、50mlの無血清培地(SFM、Gibco)と共にインキュベートし37℃で3日間培養した。その後、各モノクローナルハイブリドーマから抗体が分泌された培養培地を収集し、遠心分離によって細胞を除去し、培養上清を収集し、濾過した。次いで、抗体を、プロテインGアフィニティーカラム(GE Healthcare)を備えるAKTA精製デバイス(GE Healthcare)を用いて精製した。遠心フィルターユニット(Amicon)を用いて上清をPBSで置換することにより、精製した抗体を濃縮した。 1-3:Tie2受容体活性化 抗Ang2抗体の同定およびスクリーニング マウス抗Ang2抗体が内皮細胞においてTie2受容体の下流シグナル伝達を誘導するかを調べるために、HUVEC(Lonza)をhAng2タンパク質と抗Ang2抗体の組み合わせで処理し、Tie2受容体の主要な下流シグナル伝達タンパク質であるAktのリン酸化レベルを、免疫ブロッティングにより分析した。陰性対照群として、全長hAng2(R&D systems)単独で細胞を処理した。 具体的には、HUVEC(1×10⁵細胞/ml)を、60mm培養皿においてEGM-2培地(Lonza)中で37℃で培養した。細胞(90%のコンフルエンシー)を、血清飢餓のために、無血清EBM-2培地と共に4時間インキュベートした。血清飢餓HUVECを抗Ang2抗体とhAng2タンパク質(1μg/ml、R&D system)の混合物で処理し、さらに30分間インキュベートした。細胞を冷PBSで洗い、溶解バッファーで処理し、4℃で20分間溶解した。次いで、13000rpmで15分間の遠心分離により、細胞溶解物を調製した。細胞溶解物に5×SDSサンプルバッファーを加え、細胞溶解物を95℃で5分間沸騰させた。その後、細胞溶解物をSDS PAGEに付し、タンパク質をニトロセルロース膜(GE)に転写した。 Aktリン酸化を調べるために、ブロットを5%スキムミルク含有TBS-Tで室温(RT)で1時間ブロックし、抗ホスホAkt抗体(S473)と共に4℃で約8時間インキュベートした。増強化学発光(ECL)により、ホスホAktの量を可視化した。その後、膜をストリッピングバッファー(Thermo)中で15分間インキュベートし、次いで抗Akt抗体でリプローブして、全Akt量を決定した。 AktのS473におけるリン酸化が、hAng2と抗Ang2抗体、例えば2C8、4B9、2F10および4E2のそれぞれとの組み合わせで処理したいくつかの群において、強く誘導された(図1)。 1-4:Octet分析による、hAng2に対する抗Ang2抗体の親和性測定 hAng2に対するマウスモノクローナ抗体の親和性を、Octetシステム(ForteBio)を用いて測定した。具体的には、バッファーおよびサンプルを、ブラック96ウェルプレート(96ウェルF型ブラックプレート、Greiner)を用いて、全量200μl/ウェルで測定した。親和性測定用のバイオセンサーは、AR2Gチップ(ForteBio Octet)を用いる測定前に10分間水和した。水和後、hAng2を10mM酢酸ナトリウム、pH6.0バッファー中に10μg/mlの濃度に希釈し、AR2Gバイオセンサー上に固定し、1Mエタノールアミンでブロックした。マウスモノクローナル抗Ang2抗体を1×カイネティックバッファーで50、25、12.5、6.25、3.125および0nMに希釈し、結合に300秒間、解離に900秒間付した。親和性測定(KD)のために、結合速度(K-on)および解離速度(K-off)を結合曲線によって分析し(グローバル)、Octetデータ分析v9.0.0.10プログラムを用いて1:1結合モデルにフィットさせた。KD値を下記の表2に示す。hAng2に対するマウス抗Ang2抗体の親和性を表2に示す。 マウス抗Ang2抗体のDNA遺伝子配列分析 実施例1-3において選択した抗体(ハイブリドーマ細胞由来)のDNAヌクレオチド配列を分析した。具体的には、ハイブリドーマ細胞(2×10⁶細胞/ml)を10%FBS含有DMEM中で培養し、その後、RNeasyミニキット(Qiagen)を用いて全RNAを得た。その後、RNA濃度を測定し、逆転写(RT)反応によってcDNAを合成した。各ハイブリドーマ細胞において産生されたモノクローナル抗体の重鎖および軽鎖の可変領域遺伝子配列を増幅するために、前記cDNAを鋳型とし、マウスIgプライマーセット(Novagen)を使用して、以下の条件下にPCRを行った:94℃、5分間;[94℃に1分間、50℃に1分間、72℃に2分間]を35サイクル;72℃に6分間;4℃に冷却。各反応から得たPCR産物をTAベクター中にクローン化し、DNAシーケンシングに付し、それによって、各抗体のCDR、重鎖可変領域および軽鎖可変領域をコードするヌクレオチド配列を得た(表3~10)。 hAng2に対するマウス抗Ang2抗体のエピトープマッピング マウスモノクローナル抗体2C8および4B9によって認識されるhAng2の抗原決定基(エピトープ)を、HDX-MS(水素/重水素交換質量分析)法により分析した。HDX-MS分析法は、下記文献に記載されている:Houde D, Engen JR (2013) Methods Mol. Biol. 988: 269-89およびHoude et al. (2011) J. Pharm. Sci. 100 (6), 2071。 抗体2C8および4B9のエピトープを分析するために、組換えhAng2-RBDタンパク質を用いた。重水素標識反応の前に、hAng2-RBD/抗体混合物を、15倍希釈重水素標識バッファーの存在下に最大結合(100%)に維持されるように、3時間以上インキュベートした(KD=25nM)。調製したhAng2-RBD/抗体複合体を重水素標識バッファーで15倍希釈し、さまざまな時間で標識し、その後、同体積のクエンチングバッファーでクエンチした。標識反応時間は、0分間(重水素なし)、0.33分間、10分間、60分間および240分間であった。しかしながら、重水素なしの条件においては、重水素標識バッファーを平衡バッファーで置き換え、反応を直ちにクエンチングバッファーで停止させた。質量分析のために、重水素標識したhAng2-RBD/抗体サンプルをペプシンカラムにロードし、ペプチド消化を行った。質量分析により、hAng2-RBDのN末端の13ペプチド、および25~40アミノ酸に対応する消化ペプチドは全く検出されないことが示され、全部で45の消化ペプチドからカバー率83.7%のデータが得られた。 hAng2-RBD単独およびhAng2-RBD-抗体複合体の条件の間の重水素取り込みの差を比較分析した。重水素取り込みの有意な低下を示す領域は、抗体が直接結合しているペプチドであるか、または構造的に変化した領域である。hAng2-RBD単独とhAng2-RBD-抗体複合体との間の重水素取り込みの差が0.5~1Daまたはそれ以上であるとき、有意と見なした。 重水素取り込みの差の分析により、抗体2C8が結合するエピトープは、hAng2-RBDの配列番号2の残基61~78:QRTWKEYKVGFGNPSGEY(配列番号115)であり(表11)、抗体4B9が結合するエピトープは、配列番号2の残基14~24:KSGHTTNGIYT(配列番号116)、および配列番号2の残基41~47:EAGGGGW(配列番号117)である(表12)ことが示された。抗体4B9の場合、未決定領域(配列番号2の残基25~40)がエピトープの範囲に含まれる可能性を排除できない。各抗体に対するエピトープ分析結果は、PyMolソフトウェアを用いて作製されたhAng2-RBDの3次元構造において異なる色で示される(図2)。 マウス抗Ang2抗体のヒト化および全長IgG変換 マウス抗Ang2抗体2C8および4B9をヒトに投与する際の免疫原性を低下するために、抗体を次のようにヒト化した。 4-1:重鎖のヒト化 IGHV1-46-01は、抗体2C8の重鎖配列と64%の相同性を示すヒト抗体重鎖可変遺伝子であった。この分析に基づいて、2C8抗体のCDR領域をヒト抗体重鎖可変遺伝子IGHV1-46-01に挿入した。このプロセスにおいて、5つのヒト化重鎖抗体遺伝子をデザインした(表13)。ヒト化2C8の重鎖遺伝子に、表13のタンパク質配列中に太字で示すマウス配列への復帰変異を導入した。 IGHV3-11-01は、抗体4B9の重鎖配列と80%の相同性を示すヒト抗体重鎖可変遺伝子であった。この分析に基づいて、4B9抗体のCDR領域をヒト抗体重鎖可変遺伝子IGHV3-11-01に挿入した。その結果、このプロセスにおいて、3つのヒト化重鎖抗体遺伝子をデザインした(表13)。ヒト化4B9の重鎖遺伝子に、表13のタンパク質配列中に太字で示すマウス配列への復帰変異を導入した。 4-2:軽鎖のヒト化 IGKV1-9-01は、抗体2C8の軽鎖配列と67%の相同性を示すヒト抗体軽鎖可変遺伝子であった。この分析に基づいて、2C8抗体のCDR領域をヒト抗体軽鎖可変遺伝子IGHV1-9-01に挿入した。このプロセスにおいて、3つのヒト化軽鎖抗体遺伝子をデザインした(表13)。ヒト化2C8の軽鎖遺伝子に、表13のタンパク質配列中に太字で示すマウス配列への復帰変異を導入した。 IGKV1-39-01は、抗体4B9の軽鎖配列と70%の相同性を示すヒト抗体軽鎖可変遺伝子であった。この分析に基づいて、4B9抗体のCDR領域をヒト抗体軽鎖可変遺伝子IGHV1-39-01に挿入した。このプロセスにおいて、1つのヒト化軽鎖抗体遺伝子をデザインした(表13)。 4-3:ヒト化遺伝子合成およびヒト全長IgG抗体へのクローニング 表15の抗体のヒト化可変領域を、ヒトIgG1抗体の重鎖および軽鎖ベクター中に組み込んだ。抗体のヒト化重鎖可変領域(VH)に対応するコーディングヌクレオチドは、「EcoRI-シグナル配列-VH-NheI-CH-XhoI」からなるように、Bioneer, Inc.によって合成された。抗体のヒト化軽鎖可変領域(VL)に対応するコーディングヌクレオチドは、「EcoRI-シグナル配列-VL-BsiWI-CL-XhoI」からなるように、Bioneer, Inc.によって合成された。全長ヒトIgG抗体発現用のベクターを作製するためにEcoRIおよびXhoIを用いて、重鎖をコードするポリヌクレオチドをそれぞれ、OptiCHO(商標)抗体発現キット(Invitrogen)に含まれるpOptiVEC(商標)-TOPO TAクローニングキットのベクターにクローン化し、軽鎖をコードするポリヌクレオチドをそれぞれ、pcDNA(商標)3.3-TOPO TAクローニングキット(Invitrogen)のベクターにクローン化した。2C8H11および4B9H11のヒトIgG4クラスの抗体(それぞれ、2C8H11G4および4B9H11G4と称する)の作製のためには、2C8H11重鎖遺伝子および4B9H11重鎖遺伝子の定常領域(CH1-ヒンジ-CH2-CH3)を、IgG4クラス重鎖定常領域をコードするポリヌクレオチドに置き換えた。 4-4:ヒト化抗Ang2抗体の生産および精製 ヒト化抗Ang2抗体を生産するために、組換えタンパク質を高効率で産生することができるExpi293F(Gibco)細胞を使用した。Expi293F細胞(2×10⁶細胞/ml)をエルレンマイヤーフラスコ中で培養し、重鎖および軽鎖をコードするプラスミドを、ExpiFectamine 293トランスフェクションキットを用いてExpi293F細胞に同時トランスフェクトした。細胞を振盪インキュベーター(オービタルシェーカー、125rpm)内で、37℃、8%CO2にて5日間培養した。培養した培地を収集し、遠心分離して細胞を除去した。分泌された抗体を含む培養上清を分離し、4℃で貯蔵するか、または直ちに、アフィニティーカラム(プロテインAアガロースカラム、GE Healthcare)を備えるAKTA精製システム(GE Healthcare)を用いて精製した。精製した抗体を、0.2μタンパク質遠心式フィルター(Amicon)に通して濃縮し、溶液をPBSで置換した。 hAng2に対するヒト化抗Ang2抗体の親和性測定 hAng2に対するヒト化抗Ang2抗体の親和性を、Octetシステム(ForteBio)を用いて測定した。具体的には、バッファーおよびサンプルを、ブラック96ウェルプレート(96ウェルF型ブラックプレート、Greiner)を用いて、全量200μl/ウェルで測定した。親和性測定用のバイオセンサーは、AR2Gチップ(ForteBio Octet)を用いる測定前に10分間水和した。水和後、ヒト化抗Ang2抗体を10mM酢酸ナトリウム、pH6.0バッファー中に10μg/mlの濃度に希釈し、AR2Gバイオセンサー上に固定し、1Mエタノールアミンでブロックした。組換えhAng2を1×カイネティックバッファーで50、25、12.5、6.25、3.125および0nMに希釈し、結合に300秒間、解離に900秒間付した。親和性測定(KD)のために、結合速度(K-on)および解離速度(K-off)を結合曲線によって分析し(グローバル)、Octetデータ分析v9.0.0.10プログラムを用いて1:1結合モデルにフィットさせた。KD値を下記の表14~15に示す。 hAng2に対するヒト化4B9抗体の親和性を表14に示す。hAng2に対するヒト化2C8抗体の親和性を表15に示す。さらに、IgG4クラスの2C8H11G4および4B9H11G4抗体も、hAng2抗原に対しナノモル以下の高い親和性を示した(表16)。 選択したヒト化抗Ang2抗体のインビトロ生物学的性質の分析 6-1:Aktリン酸化 ヒト化抗Ang2抗体が内皮細胞においてTie2受容体の下流シグナル伝達を誘導するかを調べるために、HUVEC(Lonza)をAng2タンパク質とヒト化抗Ang2抗体とで処理した。その後、Tie2受容体の主要な下流シグナル伝達タンパク質であるAktのリン酸化のレベルを、免疫ブロッティングにより測定した。本試験において、Akt活性化の程度を比較するために、細胞を、完全長hAng2(R&D systems)単独、または抗体単独で処理した。 具体的には、60mm培養皿においてHUVEC細胞(1×10⁵細胞/ml)をEGM-2(Lonza)中で37℃で培養した。コンフルエンシー90%の細胞をEBM-2(Lonza)と共に4時間インキュベートした。血清飢餓HUVECを、抗Ang2抗体とhAng2タンパク質(1μg/ml、R&D system)の混合物で処理し、さらに30分間インキュベートした。細胞を冷PBSで洗い、溶解バッファーで処理し、4℃で20分間溶解した。次いで、13000rpmで15分間の遠心分離により細胞溶解物を調製した。細胞溶解物に5×SDSサンプルバッファーを加え、混合物を95℃で5分間沸騰させた。その後、混合物をSDS-PAGE、次いでウエスタンブロッティングに付した。 Aktのリン酸化を調べるために、膜を5%スキムミルク含有TBSTでRTで1時間ブロックし、抗ホスホAkt抗体(S473)と共に4℃で約8時間インキュベートした。増強化学発光(ECL)によって、ホスホAktの量を可視化した。次いで、膜をストリッピングバッファー(Thermo)中で15分間インキュベートし、その後、抗Akt抗体でリプローブして全Aktの量を決定した。 図3に示すように、4B9H11および2C8H11処理群のいずれにおいても、Aktリン酸化は、hAng2存在下の抗Ang2抗体0.5μg/mlでの処理によって顕著に増加し、50μg/mlの抗体濃度まで維持された。データはヒト化抗Ang2抗体は、内皮細胞においてTie2受容体の主要な下流シグナル伝達分子であるAktの活性化を強く誘導できることを示している。ヒト化4B9H11-または2C8H11-IgG4抗体を試験した場合も同様のパターンが見られた。 6-2:ヒト化抗Ang2抗体により誘導されるTie2リン酸化 Ang2はTie2受容体に結合して、弱いアゴニストまたはアンタゴニストとして作用する。本発明の抗Ang2抗体は、Angに結合してAng2-抗体複合体を誘導し、さらにTie2受容体のクラスター形成を引き起こし、結果的にTie2受容体の活性化を高める。HUVECを用いて、Tie2リン酸化に対する抗Ang2抗体の効果を分析する実験を行った。 具体的には、100mm培養皿においてHUVEC(Lonza)をEGM-2(Lonza)中で37℃および5%のCO2濃度で培養した。80~90%のコンフルエンシーで、細胞を血清飢餓のためにEBM-2(Lonza)培地に2~6時間交換した。ヒト化抗Ang2抗体をさまざまな濃度(0.02μg/ml~50μg/ml)でhAng2タンパク質(1μg/ml、R&D systems)と30分間混合した。その後、混合物で培養細胞を処理し、さらに30分間インキュベートした。細胞を冷PBSで2回洗い、1000μlの溶解バッファー(10mM Tris-Cl(pH7.4)、150mM NaCl、5mM EDTA、10%グリセロール、1%Triton X-100、プロテアーゼ阻害剤、ホスファターゼ阻害剤)で溶解し、4℃で60分間溶解した。細胞抽出物を調製し、12000rpmで10分間遠心分離した。上清をBCAアッセイによる測定に付した。 0.5mgの細胞溶解物に、1μgのTie2抗体(R&D systems、AF313)を加え、4℃で一晩インキュベートした。その後、Dynabeads(商標)プロテインG(Life technologies)を加えて2時間反応させ、免疫沈降を行った。ビーズをチューブの1つの側に磁石で集め、溶解バッファーで3回洗い、還元剤を含む2×SDSサンプルバッファーと共に70℃で10分間インキュベートした。ビーズをサンプルから取り出し、4~15%SDSタンパク質ゲル(Bio-Rad)上で電気泳動し、0.45μmのPVDF膜に転写した。 膜を、5%(v/v)BSAと混合したTBS-Tにより室温で1時間ブロックし、抗ホスホチロシン抗体(4G10、Millipore)と共に4℃で8時間インキュベートし、次いでHRP結合抗マウス抗体とインキュベートした後、ウエスタンブロッティングを行った。免疫沈降Tie2の量を測定するために、膜をストリッピングバッファー(Thermo)中で15分間反応させ、次いで再度ブロックし、抗Tie2抗体(R&D systems、AF313)でリプローブした。図4に示すように、図3に示したのと同様、抗Ang2抗体をAng2と共にHUVEC細胞に加えたとき、Tie2リン酸化が用量依存的に強く誘導された。同様のパターンが、ヒト化4B9H11-または2C8H11-IgG4抗体を試験したときにも見られた。これらのデータは、ヒト化抗Ang2抗体2C8H11および4B9H11は、ヒト内皮細胞においてTie2受容体の活性化を直接に誘導することを示している。 6-3:HUVECにおけるTie2クラスター形成およびFOXO1移行 抗Ang2抗体による、細胞間結合部位におけるTie2クラスター形成、および核からサイトゾルへのFOXO1の移行を、HUVECにおいて免疫蛍光により試験した。具体的には、HUVECを8ウェルスライドチャンバー(Lab-TekII)に播種し、EGM-2培地中に2~3日間維持した。100%コンフルエンスで、細胞をEBM-2培地で4時間の血清飢餓に付し、その後1μg/mlの抗Ang2抗体と1μg/mlのhAng2とで30分間処置した。その後、細胞をPBS中の4%ホルムアルデヒドで室温(RT)で10分間固定し、PBS中の0.1%Triton X-100で透過性とし、PBS中の1%のBSAでRTで60分間ブロックし、一次抗体と共にRTで1時間インキュベートした。hTie2、FOXO1およびヒトFcに対する一次抗体を使用した。次いで、細胞を二次抗体(Invitrogen)と共に暗所においてRTで1時間インキュベートし、DAPI(Vector Labs)と共にVectashieldマウンティング培地を用いてマウントした。レーザー走査共焦点顕微鏡(LSM880, CarlZeiss)で画像を撮影した。 図5に示すように、2C8H11または4B9H11とhAng2による処理は、Tie2クラスター形成および活性化を誘導することが知られているComp-Ang1(CA1)または対照Ang2抗体(Han et al., 2016, Science Translation Medicine)とまったく同じように、細胞間接着へのTie2移行/クラスター形成を誘導した。リン酸化後の細胞質におけるFOXO1局在化の過去の報告(Zhang et al, JBC 2002, 277, 45276-45284)と一致して、FOXO1は血清飢餓基底状態において核内に局在したが、C28H11+hAng2または4B9H11+hAng2による処理によって、血清飢餓対照と比較して、核から顕著に消失した(赤)。一方、Ang2による処理は、核からサイトゾルへのFOXO1移行をわずかに誘導した。興味深いことに、2C8H11、4B9H11ヒト化抗体(シアン)は、細胞間接着におけるクラスター形成Tie2受容体およびサイトゾル中に取り込まれたTie2受容体と共局在することが観察され(図5)、抗Ang2抗体はAng2との結合を介してTie2受容体と3成分複合体を形成することが示された。 2C8H11により誘導されるTie2クラスター形成およびFOXO1移行を経時試験(10分~240分)において調べた。図6に示すように、hAng2の存在下に対照Ang2Abは、細胞間接着におけるTie2クラスター形成(緑)を10分以内に誘導し、クラスター形成したTie2受容体のエンドサイトーシスを誘導した。対照Ang2Ab+hAng2での30分間の処理後、細胞間接着におけるTie2受容体は明らかに減少し、120分および240分後にTie2受容体はほぼ消失した。対照Ang2抗体を抗ヒトFc抗体で染色すると(シアン)、Tie2受容体とまったく同様のパターンが示された。対照的に、2C8H11とhAng2の場合は、細胞間接着におけるTie2クラスター形成は、240分の処理後にも維持された。これに一致して、細胞間接着においてTie2受容体と共局在した2C8H11抗体も、240分後まで維持された(図6)。 6-4:ヒト化抗Ang2抗体による血管透過性抑制 インビトロ血管透過性アッセイキット(Millipore)を製造者の指示にしたがって使用して、HUVECにおいて血管漏出アッセイを行った。HUVECをトランスウェルプレートのインサートに播種し、100%コンフルエンスとなるまで3日間培養した。HUVECを、Ang2(1μg/ml)、Ang2(1μg/ml)と対照、2C8H11または4B9H11抗体(1μg/ml)の組み合わせと共に30分間インキュベートし、その後TNF-a(100ng/ml)を加え、細胞を37℃で22時間インキュベートした。上部チャンバーにFITC-デキストランを加え、20分間インキュベートした。FITC-デキストランのHUVEC単層透過を、それぞれ485nmおよび535nmの励起波長および発光波長で蛍光リーダーにより測定した。図7に示すように、Ang2と抗Ang2抗体の組み合わせによる前処理は、血管漏出促進因子TNF-aにより誘発される血管漏出を顕著に抑制した。 mAng2に対するヒト化抗Ang2抗体の親和性測定 マウスAng2(mAng2)に対するヒト化抗体の親和性をELISAによって分析した。具体的には、ハーフ96ウェルプレート(Corning 3690)においてウェル当たり20ngで、mAng2を30μlのコーティングバッファー(0.1M炭酸ナトリウムバッファー)で希釈し、4℃で一晩インキュベートした。TBS-T溶液で3回洗った後、ウェルプレートを3%スキムミルクにより室温で1時間ブロックし、その後再度洗った。2C8H11および4B9H11を3mg/mlから300ng/mlまで連続希釈した。希釈した抗Ang2抗体30μlをウェルに入れ、ウェルプレートを室温で2時間インキュベートした。次いで、1:30000希釈した抗ヒトIgG(Fab)-HRP(Jackson)二次抗体30μlを各ウェルに加え、室温で1時間インキュベートした。全ての反応の完了後、プレートを再びTBS-Tで洗い、各ウェルを30μlのTMB溶液で処理した。5分間発色させた後、プレートを1N硫酸で処理して反応を停止させ、450nmにおける吸光度を測定した。測定したOD値に基づき、PerkinElmerのWorkoOut 2.5プログラムを用いてEC50値を分析した。mAng2結合における4B9H11および2C8H11のEC50はそれぞれ、105μg/mlおよび97μg/mlであった(図8)。 LLC皮下モデルにおける腫瘍増殖抑制効果の評価 2C8H11抗Ang2抗体の腫瘍増殖抑制能力を、LLC(ルイス肺癌)細胞株腫瘍モデルにおいて試験した。具体的には、LLC細胞株(ATCC)を、10%FBS(Gibco)を補充したDMEM(Gibco)中で培養した。ケタミンおよびキシラジンの混合物で麻酔した6~8週齢C57BL/6マウス(Jackson Laboratory)に、LLC細胞(PBS100μl中1×10⁶)を皮下注射した。腫瘍体積が50~100mm3に達したら、マウスに10mg/kgの2C8H11抗体を2~3日毎に腹腔内投与した。単剤処置群および併用処置群の両方に、シスプラチン(Cpt)を3mg/kgの用量で1回腹腔内注射した。その後の日々の腫瘍体積の変化を追跡した。腫瘍体積(V)は、式: V=(幅2×長さ)/2 にしたがって求めた。 試験は次の4群において行った:Fc(対照群)、Fc+Cpt群、2C8H11群、および2C8H11+Cpt群。図9に示すように、2C8H11抗体はFcと比較して、腫瘍増殖を29%抑制し、これは、Fc+Cpt注射による腫瘍増殖抑制効果と同程度であった。2C8H11およびCptの併用処置は、Fcと比較して腫瘍増殖を47%遅延させた。したがって、これらの結果は、2C8H11およびCptの併用処置が腫瘍増殖を最も強力に抑制したことを示している。 2C8H11抗体の腫瘍血管正常化作用 2C8H11抗体による腫瘍血管の変化を調べるために、腫瘍サンプルの凍結切片を調達し、血管特異的マーカーであるCD31およびペリサイト特異的マーカーであるPDGFRβの染色によって免疫蛍光分析を行った。具体的には、実施例8に記載の実験のマウスから腫瘍サンプルを採取し、4%パラホルムアルデヒド(PFA、Merck)で固定し、30%スクロース(Junsei)で脱水し、OCT化合物(Leica)に包埋し、クリオスタット(Leica)を用いて切断した。得られた凍結切片を、タンパク質ブロッキングバッファー(DAKO)を用いて1時間ブロックした。次いで、PBS中のハムスター抗CD31抗体(1:200、Millipore)およびラット抗PDGFRβ抗体(1:200、eBioscience)により、4℃で8時間染色処理した。PBSで3回洗った後、切片をPBS中のAlexa488結合抗ハムスターIgG抗体およびAlexa594結合抗ラットIgG抗体(1:1000、Jackson Immunoresearch)により、室温で1時間染色した。PBSでさらに3回洗った後、切片を、カバースリップ(Marienfeld)を用いて蛍光マウンティング培地(DAKO)中でマウントした。染色切片を、LSM880共焦点顕微鏡(Zeiss)を用いて画像化した。 結果を図10に示す。赤色のシグナルはCD31+領域を示し、緑色のシグナルはPDGFRβ+領域を示す。FcまたはFc+Cptで処理した腫瘍と比較して、2C8H11または2C8H11+Cptで処理した腫瘍において腫瘍血管(BV)密度が56%低下し、該血管系の形態学が正常血管と同様となるよう正常化された。さらに、2C8H11または2C8H11+Cptで処理した腫瘍ではPDGFRβ+ペリサイト領域が増加し(2.4倍増加)、血管および血管周囲細胞が互いにより密に会合していた。これらの結果は、2C8H11抗体が腫瘍塊内の血管密度を低下し、その形態学を正常化することができることを示している。 2C8H11抗体による腫瘍血管機能の向上 2C8H11で処置後の腫瘍血管の機能を分析するために、血管灌流性および低酸素状態を評価した。腫瘍塊を採取する前に、マウスに100μlのDyLight488-レクチン(Vector laboratory)を腹腔内注射し、PBSに溶解した60mg/kgのピモニダゾール-HCl(Hypoxyprobe)を屠殺前30分間腹腔内注入した。マウスを4%PFAで灌流固定した。腫瘍塊から凍結切片を調達し、PBS中のハムスター抗CD31抗体(1:200、Millipore)および4.3.11.3マウスパシフィックブルー-Mab(1:50、Hypoxyprobe)で染色した。LSM880共焦点顕微鏡(Zeiss)を用いて切片を画像化し、得られた画像を、ImageJソフトウェア(http://rsb.info.nih.gov/ij))を用いてレクチン+領域/CD31+領域およびHypoxyprobe+領域を定量して分析した。 結果を図11に示す。FcまたはFc+Cptによる処置と比較して、2C8H11または2C8H11+Cptで処置した腫瘍は、レクチン+領域(緑)/CD31+領域(赤)の増加で判断されるように、灌流が増加しており(約3倍の灌流増加)、腫瘍血管の正常化を示した。さらに、Hypoxyprobe+領域(緑)で示される低酸素は、2C8H11または2C8H11+Cptで処置した腫瘍において、FcまたはFc+Cptで処置した腫瘍と比較して72%減少した。これらの結果は、2C8H11抗体は、腫瘍血管の形態学を正常化するだけでなく、その機能をも、血管灌流の増加によって向上し、それによって低酸素の軽減をもたらすことを示している。 2C8H11抗体による腫瘍塊中への抗癌剤デリバリーの増加 薬剤CptはDNA合成の阻害によって腫瘍増殖を抑制するものであり、ヒト癌患者において広く用いられている。この薬剤の腫瘍へのデリバリーを2C8抗体が腫瘍血管正常化によって増加しうるかを調べるために、腫瘍の凍結切片を、抗シスプラチン修飾DNA抗体(1:100、Abcam)およびハムスター抗CD31抗体(1:200、Millipore)で染色した。図12に示すように、Cpt修飾DNA(緑)のレベルは、2C8H11/Cpt処置群において、Fc+Cpt処置群と比較して2.1倍の顕著な増加を示した。この結果は、腫瘍塊へのCptデリバリーが、2C8H11抗体による腫瘍血管の正常化によって高められたこと、それによって腫瘍増殖が強力に抑制されることを示している。 レーザー誘発CNVモデルにおける2C8H11抗体のCNV低減および血管漏出抑制効果 2C8H11抗体について、滲出型加齢黄斑変性(AMD)の指標である脈絡膜血管新生(CNV)を抑制する能力を、レーザー誘発CNVモデルを用いて試験した。5mg/mlのフェニレフリンおよび5mg/mlのトロピカミドの点眼剤(Santen Pharmaceutical)による散瞳、および局所麻酔用の0.5%プロパラカイン塩酸塩点眼剤(Alcon)の点眼後に、スリットランプデリバリーシステムを備えるレーザー光凝固装置(Lumenis Inc.)を、網膜観察用コンタクトレンズとしてのカバーガラスと共に用いた。各眼の4つの位置(後極の3、6、9および12時の位置)に十分なレーザーエネルギー(波長532nm、出力250mW、持続時間100ms、スポットサイズ50μm)をデリバーした。レーザー光凝固時にブルッフ膜の裂傷を意味する泡を生じた傷害のみを、本試験に含めた。レーザー部位において出血を含むスポットを、分析から除外した。臨床的状況を模すために、2C8H11(5μg)をレーザー光凝固後7日目のマウスに、硝子体内投与した(図13A)。対照として、または比較のために、FcまたはVEGF-Trap(各5μg)を同じ方法でマウスに投与した。所定の薬剤を硝子体内投与するために、各薬剤5μgを含む約1μl(5mg/ml)を、ガラスキャピラリーピペットを取り付けたNanoliter 2000マイクロインジェクター(World Precision Instruments)を用いて、硝子体腔内に注入した。レーザー光凝固後14日目に、網膜色素上皮(RPE)-脈絡膜-強膜フラットマウントのCD31+CNVの体積を、MATLAB画像処理ツールボックス(MathWorks)を用いて計算した。CNVの内皮細胞の検出のために、抗CD31抗体(1:200、Millipore)を使用した。VEGF-Trapは効果的に、Fcと比較して64.4%のCNV低減をもたらし、2C8H11も同様にCNV低減をもたらした(65.3%)(図13B、C)。フルオレセイン血管造影(FA)およびインドシアニングリーン血管造影(ICGA)を組み合わせることにより、レーザー傷害部位付近の新血管における血管漏出を測定することができた。フルオレセインおよびICGの励起光源として、それぞれ488nmおよび785nmの連続波レーザーモジュールを使用した。回転ポリゴンミラー(MC-5; Lincoln Laser)およびガルバノメーターベースの走査ミラー(6230H; Cambridge technology)からなるスキャナーシステムによって、励起レーザーのラスタースキャンパターンを達成し、撮影レンズの後部開口にデリバーした。広視野の眼底蛍光画像を提供する撮影レンズとして、高開口数(NA)の対物レンズ(PlanApo λ, NA 0.75; Nikon)を使用した。光電子増倍管(R9110; Hamamatsu Photonics)により検出した蛍光シグナルを、リアルタイムで、フレームグラバーによってデジタル変換し、フレーム当たり512×512ピクセルのサイズの画像へと再構成した。血管造影システムを用いる、後期相(6分間)のFAおよびICGA画像の可視化のために、10mgのフルオレセインナトリウム(Alcon)および0.15mgのICG(Daiichi Pharmaceutical)をそれぞれ腹腔内および静脈内に投与した。画像の質を高めるために、撮影手順を全身麻酔および散瞳下に行った。CNVからの漏出面積を、FA画像において測定された高蛍光の総面積を、ICGA画像において測定された総CNV面積で除したものとして、Javaベースのイメージングソフトウェア(ImajeJ; National Institutes of Health)を用いて計算した。Fcと比較して、VEGF-Trap(37.0%)および2C8H11(38.3%)の両方が同じように血管漏出を抑制した(図13B、D)。注目すべきことに、Fc処置群はレーザー光凝固後6~14日目の間に血管漏出の顕著な変化を示さなかったが、VEGF-Trapおよび2C8H11は血管漏出を顕著に低下させた(それぞれ45.6%および50.0%)(図13B、D)。したがって、レーザー誘発CNVのマウスモデルにおいてCNVおよび血管漏出の抑制の程度は、VEGF-Trapと2C8H11との間で、量的に差が無かった。 2C8H11抗体のCNV低減および脈絡膜毛細血管再生作用 CNV確立後のCNV低減および脈絡膜毛細血管再生における2C8H11の効果を調べるために、レーザー光凝固後7日目のマウスに、Fc、VEGF-Trap、対照抗体または2C8H11(各5μg)を、Nanoliter 2000マイクロインジェクター(World Precision Instruments)によって硝子体内投与した。レーザー光凝固後、6、14、21および35日目に、生体光コヒーレンストモグラフィー血管造影(OCTA)を行った(図14A)。プロトタイプの高速波長掃引型光コヒーレンストモグラフィー(OCT)システムを使用して、1048nmを中心とするカスタム リングキャビティ波長掃引レーザーを用い、Aスキャンレート230kHzで網膜脈絡膜層を撮影した。薬剤の硝子体内注入後のレーザー光凝固部位における脈絡膜血管構造の再生をモニターするために、網膜-脈絡膜層内の1.7mm×1.7mmの視野のOCT画像を集めた。網膜および脈絡膜実質を伴わず血管の選択的可視化を可能にする断面OCT血管画像を得るために、繰り返し記録されたBスキャン画像を比較して、血管内の赤血球の移動によって主に引き起こされた該画像のピクセル毎の強度の脱相関を検出した。次いで、自動の層平坦化およびセグメンテーションアルゴリズムを使用することにより、断面OCT血管画像をRPEに対して平坦化し、網膜内層、網膜外層および脈絡膜層の3つの深度範囲における各平坦化断面OCT血管画像の個別の投影によってen face OCT血管画像を作製した。外網状層およびブルッフ膜を、網膜内層、網膜外層および脈絡膜層を隔てる境界層として規定した。網膜および脈絡膜血管の密度を、閾値レベルを上回る脱相関値を有するピクセルとして定義される、血流のある血管の占める測定面積の割合として、自動計算した。無血管ピクセルを、脈絡膜層を示すen face OCT血管画像から、MATLABの画像処理ツールボックス(MathWorks)によって検出した。その後、レーザー傷害部位の周囲の無血管スペースの総体積を、1ピクセルの体積を掛けた無血管ピクセルの数を合計することによって計算した。無血管スペース体積の変化する様相を分析するために、各眼において連続的に測定された値をベースライン値からの変化パーセンテージに変換した。Fc処置した場合、網膜外層のCNV体積にわずかな減少が見られ、VEGF-Trapおよび2C8H11で処置した場合はCNV体積は顕著に低下した(図14B、C)。Fc処置した場合、脈絡膜の無血管スペースのわずかな減少が見られた。興味深いことに、2C8H11処置眼の脈絡膜は、レーザー光凝固後14、21および35日目にそれぞれ30.1%、36.4%および37.0%という、段階的な著しい無血管スペース減少を示した(図14B、D)。同様に、対照Ab処置眼の脈絡膜は、レーザー光凝固後14、21および35日目にそれぞれ21.7%、30.2%および38.0%という、無血管スペースの減少を示した(図14B、D)。しかしながら、VEGF-Trap処置眼の脈絡膜は、14、21および5日目にそれぞれ11.4%、16.0%および18.1%の無血管スペース増加を示した(図14B、D)。これらの知見は全体として、レーザー誘発CNVモデルにおいて、2C8H11および対照Abの両方が脈絡膜毛細血管の再生を促進するが、VEGF-Trapは脈絡膜毛細血管の退化をもたらすことを示している。 CNVの内皮細胞における2C8H11抗体およびCD31の共局在 皮下注射された2C8H11も、CNVに対して処置効果を示すことができるかを調べるために、まず、CNVの内皮細胞における2C8H11抗体およびCD31の共局在を評価した。レーザー光凝固後1日目に、2C8H11抗体(25mg/kg)の皮下投与を行った。対照として、Fc(25mg/kg)を同じ様式でマウスに投与した。レーザー光凝固後2、4および8日目に、CNVの内皮細胞における2C8H11抗体および抗CD31抗体(1:200、Millipore)の共局在を、抗ヒトIgG抗体(1:1000、Jackson ImmunoResearch Laboratories)で直接に検出した(図15A)。投与された2C8H11は、CNV領域におけるCD31+内皮細胞において高度に検出可能であった(図15B~D)。 皮下注射2C8H11抗体のCNV抑制効果 CNV抑制における皮下注射2C8H11抗体の効果を調べるために、レーザー光凝固後1日目に、2C8H11抗体(25mg/kg)の皮下投与を行った。対照として、Fc(25mg/kg)を同じ様式でマウスに投与した。レーザー光凝固後8日目に、抗CD31抗体(1:200、Millipore)を用いてCNVの内皮細胞を検出し、RPE-脈絡膜-強膜フラットマウントのCD31+CNVの体積を、MATLAB画像処理ツールボックス(MathWorks)を用いて計算した(図16A)。2C8H11は効果的に、CNV形成をFcと比較して69.9%抑制した(図16B、C)。このことは、2C8H11は、硝子体内注射だけでなく皮下注射によっても、CNV抑制作用を示すことを示している。 本発明の微生物は2C8と称され、Cancer Research Institute, Seoul National University, College of Medicine, 28 Yongon-dong, Chongno-Gu, Seoul, 110-744, KoreaのKorean Cell Line Bank(KCLB)に2018年1月30日に寄託された(受託番号:KCLRF-BP-00417)。 本発明の微生物は4B9と称され、Cancer Research Institute, Seoul National University, College of Medicine, 28 Yongon-dong, Chongno-Gu, Seoul, 110-744, KoreaのKorean Cell Line Bank(KCLB)に2018年1月30日に寄託された(受託番号:KCLRF-BP-00418)。 本発明は、Ang2を阻害すると同時にTie2を活性化して下流シグナル伝達を促進する抗体に関する。本発明はそれにより、Ang2により誘導される血管形成を抑制し、血管透過性を低下する方法を提供する。さらに、本発明の抗体は、異常な血管形成が関与する疾患、例えば眼疾患または癌、および/または血管透過性亢進によって引き起こされる疾患の診断および処置に有用でありうる。 本発明をその特定の特徴に基づいて詳細に説明したが、そのような特定の技術は好ましい態様に過ぎず、本発明の範囲はそのような態様に限定されないことは当業者に明らかである。したがって、本発明の実質的な範囲は、特許請求の範囲およびその等価物によって規定される。 [配列表フリーテキスト] 電子ファイルにおいて添付される。
- 특허 등록번호
- 7366068B
- 특허 출원번호
- 2020566520
- 출원일
- 등록일
- 국가
- 일본
- 출원인
- 기초과학연구원, 한국과학기술원
- 발명자
- コ・グヨン, ペ・チョミル, キム・ミジョン, パク・ジンソン, ソ・スジン, キム・ジェリョン, パク・チャンリョル, キム・ピハン, オ・ワンユル
- 중요 키워드
- seq, antibody, chain variable, variable region, antigen