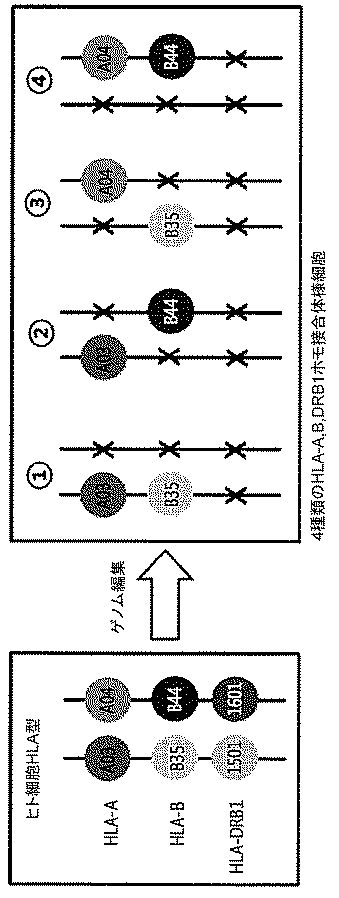
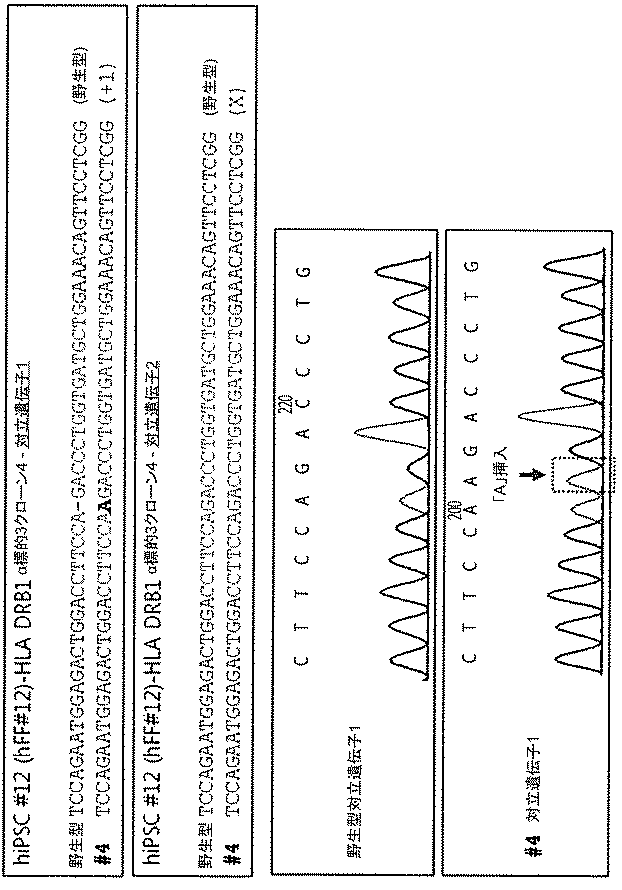
[특허 요약] 本発明は、ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種を含む単離細胞での遺伝子欠失または改変により1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む、免疫適合性細胞または細胞集団を作製するための方法、上記作製方法により作製される免疫適合性細胞、ならびに上記作製方法により作製される免疫適合性細胞を含む細胞集団に関する。 ヒト胚性幹細胞(hESC)は、無制限な自己複製が可能な多能性細胞であり、かつ、3種類の胚葉すべての細胞タイプへと分化できる。適切な条件下では、hESCは、外的シグナルに応答し、かつ機能的心筋細胞および膵臓β細胞などの特殊化した細胞タイプへと分化するように誘導できるので、hESCの最初の使用は、再生医療での新たな時代の到来を告げた。これらの特性は、hESCを再生医療での有用な細胞供給源とする。神経変性疾患、自己免疫疾患、心筋疾患および造血疾患に見舞われた患者は、幹細胞療法の潜在的受益者である。それらの驚異的な可能性にもかかわらず、同種異系hESC由来細胞の免疫拒絶が、臨床での細胞の使用にとって大きな障害である。主要組織適合性複合体中の遺伝子によりコードされるヒト白血球抗原(HLA)の細胞表面発現が、主要な免疫学的障壁である。 hESCの固有の特性は、体細胞核移植(SNT)により、または、誘導型多能性幹細胞(iPSC)と名付けられているESC様細胞へと体細胞を誘導できる4種類の転写因子Oct4(O)、Sox2(S)、Klf4(K)、およびc-Myc(M)の強制的発現により、体細胞で再現することができる。これらの2種類のアプローチは、患者特異的な多能性幹細胞の誘導を可能にする。重要なことに、これらの細胞は患者自身の細胞から作製されるので、患者の免疫系がそれらを拒絶しないであろうと考えられる。 しかしながら、ヒト体細胞のSNT媒介再プログラミングはその初期段階にあり、効率が低く、かつ卵母細胞の提供を必要とするので、まだ実用的な解決策を示すことはできない。最近の報告によれば、iPSCの比較的シンプルな誘導は有望であるものの、転写因子に基づく再プログラミングは、不完全なエピジェネティック再プログラミングを伴う。したがって、臨床でのそれらの細胞の使用は、iPSCクローンの詳細な試験を必要とし、これは面倒である。さらに、個々の患者に対する適正製造基準(good manufacturing practices;GMP)の下での多能性幹細胞の作製は、法外な資金を要するものである可能性が高い。 幹細胞移植に対する免疫学的障壁を克服するための1つのアプローチは、集団のうちの著しい割合に適合するであろうHLAハプロタイプを有する臨床グレードのhESC/iPSC/SNT-hESCバンクを確立することである。しかしながら、医薬品適正製造基準(current good manufacturing practice;cGMP)下でのhESC/iPSC/SNT-hESC細胞株の誘導は、相当な量の金銭および時間の投資を必要とする。 hESC誘導体の免疫拒絶を回避するための別の解決策は、HLA分子の遺伝学的操作である。ジンクフィンガーヌクレアーゼを用いることにより、Torikaiらは、ESCでヒト白血球抗原(HLA)クラスIを選択的に除去し、かつHLA-A細胞がHLA拘束性細胞傷害性Tリンパ球からの溶解を逃れることができたことを実証した。しかしながら、HLAクラスI完全ノックアウト細胞は、NK細胞媒介性細胞傷害性に対する標的である(Oberg L etc., Eur J Immunol., 2004, 34(6): 1646-1653)。 別の研究では、Riolobosらは、主要組織適合性複合体(MHC)クラスI分子のアクセサリー鎖をコードし、その表面発現に必要とされるβ-2ミクログロブリン(B2M)を破壊した(Laura Riolobos etc., 2013, 21(6): 1232-1241)。したがって、B2M遺伝子のホモ接合欠失は、クラスI HLA分子の表面移行を妨げ、かつ免疫原性を低下させる。しかしながら、B2M遺伝子を欠損した造血幹細胞がNK細胞により排除されることが報告されているので、このアプローチは、限定された解決策を提供する。比較的多型でないHLA-EまたはHLA-G-B2Mキメラタンパク質の強制的発現はin vitroでNK細胞媒介溶解からクラスI陰性細胞を保護するが、いかなるin vivoデータも未だに報告されていない。 より最近、細胞傷害性Tリンパ球関連タンパク質4(CTLA4)-免疫グロブリンおよびプログラムされた細胞死リガンド1(PDL1)ノックインヒトESC(hESC)が、ヒト化マウスで、同時に、T細胞共刺激経路を妨害し、かつT細胞阻害経路を活性化することが示された。感染細胞もまた、免疫応答を受けることが周知である。これらのCTLA4およびPDL1二重ノックイン細胞が、感染された場合に免疫細胞により除去され得るか否かを示すin vivo研究はない。 HLA分子の単一対立遺伝子突然変異および結果として生じるHLAホモ接合hESCの誘導は、hESCの免疫拒絶を克服する解決策を提示する可能性があるようである。既存のhESC株からのホモ接合hESCの小規模ライブラリーの作製は、ヒト集団の相当な割合を網羅し得るであろう。 Oberg L etc., Eur J Immunol., 2004, 34(6): 1646-1653 Laura Riolobos etc., 2013, 21(6): 1232-1241 本発明者らは、半接合型でHLA遺伝子を担持し、それによりレシピエントでの免疫拒絶を引き起こさない移植用細胞、およびそれを含む細胞集団を構築するためのプロセスを開発するために、徹底した研究を行なった。結果として、本発明者らは、多数のレシピエントに対して免疫適合性である移植用細胞、およびそれを含む細胞集団を、HLA-1遺伝子、HLA-B遺伝子およびHLA-DR遺伝子、すなわち3種類の主要なHLA型決定遺伝子を編集することにより作製できることを発見し、それにより本発明を完成させた。 本発明の1つの目的は、免疫適合性細胞または細胞集団を作製するための方法を提供することであり、該方法は、ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種を含む、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む。 本発明の別の目的は、免疫適合性細胞または細胞集団を作製するための方法を提供することであり、該方法は、ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種がヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む。 本発明の別の目的は、上記作製方法により作製される免疫適合性細胞を提供することである。 本発明の別の目的は、上記作製方法により作製される免疫適合性細胞を含む細胞集団を提供することである。 本発明の別の目的は、免疫適合性細胞または細胞集団を作製するための方法を提供することであり、該方法は、以下のステップを含む:(a) ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種がヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップ、および(b) ステップ(a)で作製される細胞を収集するステップ。 本発明に従えば、多数のレシピエントに対して免疫適合性である細胞を、移植用同種異系細胞から、免疫拒絶を引き起こし得る重要な組織適合性抗原(HLA)遺伝子を編集することにより、作製することができる。したがって、数種類の異なる細胞を、本プロセスを用いて構築し、かつバンク化に供する場合に、必要な際にはすぐに同種異系移植に用いることができる、細胞療法に対する非常に重要な基礎を提供することが可能である。 HLA-A遺伝子およびHLA-B遺伝子の親対立遺伝子および母系対立遺伝子の一方または両方をノックアウトすること、ならびにHLA-DRB1遺伝子の2個の対立遺伝子の両方をノックアウトすることによる、免疫適合性細胞を作製しかつ細胞集団を構築するための方法を示す模式図である。 HLA-A遺伝子、HLA-B遺伝子およびHLA-DRB1遺伝子の親対立遺伝子および母系対立遺伝子の一方または両方をノックアウトした場合に、HLA-A遺伝子、HLA-B遺伝子およびHLA-DRB1遺伝子に関して合計で8種類のホモ接合様細胞が、1人のドナーの細胞から作製できることを示す例示図である。 HLA-A遺伝子およびHLA-B遺伝子の父系(parental)対立遺伝子および母系対立遺伝子の一方をノックアウトし、かつHLA-DRB1遺伝子の前記2個の対立遺伝子の両方をノックアウトした場合に、HLA-A遺伝子、HLA-B遺伝子およびHLA-DRB1遺伝子に関して合計で4種類のホモ接合様細胞が、1人のドナーの細胞から作製できることを示す例示図である。 Cas9タンパク質およびDRB1ガイドRNAを発現するプラスミドを、エレクトロポレーションを介してヒト誘導型多能性幹細胞#12に導入した後に、DRB1遺伝子中の標的配列の部位にindelが導入されるか否かを分析する結果を示す図である。 Cas9タンパク質およびDRB1ガイドRNAを、エレクトロポレーションを介してヒト誘導型多能性幹細胞#8に導入した後に、DRB1遺伝子中の標的配列の部位にindelが導入されるか否かを分析する結果を示す図である。 配列分析を通じて、図5にて特定されたクローンの中で、クローン#8の対立遺伝子2にindelが存在するか否かを特定する結果を示す図である。 Cas9タンパク質およびDRB1ガイドRNAを、エレクトロポレーションを介してヒト誘導型多能性幹細胞#12に導入した後に、DRB1遺伝子中の標的配列の部位にindelが導入されるか否かを分析する結果を示す図である。 配列分析を通じて、図7にて特定されたクローンの中で、クローン#4の対立遺伝子1にindelが存在するか否かを特定する結果を示す図である。 Cas9タンパク質およびDRB1ガイドRNAを、エレクトロポレーションを介してヒト胚性幹細胞H9#85およびCHA15#34、ならびにヒト誘導型多能性幹細胞hiPSC12#13に導入した後に、配列分析を通じて、DRB1遺伝子中の標的配列の部位にindelが導入されるか否かを特定する結果を示す図である。 図9で特定されたクローンの多能性を明らかにする結果を示す図である。 Cas9タンパク質およびHLA-A sgRNAを用いて、DRB1遺伝子の両方の対立遺伝子がノックアウトされた細胞中のHLA-A遺伝子の一方の対立遺伝子をノックアウトするプロセスを示す模式図である。 HLA-A遺伝子型およびA#69クローンおよびA#300クローンの配列を分析する結果を示す図である。 図12にて特定されたクローンで、Cas9タンパク質およびHLA-B sgRNAを用いて、HLA-B遺伝子の一方の対立遺伝子をノックアウトするプロセスを示す模式図である。 #53、#34、#98、および#134クローンのHLA-B遺伝子型を分析する結果を示す図である。 #53、#34、#98、および#134クローンのHLA-B配列を分析する結果を示す図である。 HLA-A*02+/*03-およびHLA-B*35+/*44-遺伝子型を有し、DRB1遺伝子の両方の対立遺伝子がノックアウトされているH9クローンの多能性を明らかにする結果を示す図である。 一実施形態では、本発明は、免疫適合性細胞を作製するための方法を提供し、該方法は、ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種を含む、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む。単離された細胞は、ヘテロ接合またはホモ接合である免疫適合性抗原遺伝子を含むことができ、編集ステップは、2個の対立遺伝子の編集であり得る。 別の実施形態では、本発明は、免疫適合性細胞を作製するための方法を提供し、該方法は、ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種がヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む。また、上記作製方法は、免疫適合性細胞を含む細胞集団を作製するための方法でもあり得る。 さらに、上記作製方法は、免疫適合性細胞を作製するための方法であり得、該方法は、免疫適合性抗原遺伝子であるHLA-AまたはHLA-Bがヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子欠失または改変により、免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む。上記の通り、作製方法は、免疫適合性細胞を含む細胞集団を作製するためのプロセスであり得る。しかしながら、特にそれに限定されるものではない。 治療目的で使用されるために、すべての細胞療法が克服しなければならない最も顕著な障壁は、免疫拒絶である。免疫拒絶を引き起こす物質は、主要組織適合性抗原(MHC)と称される6種類のHLA(HLA-A、HLA-B、HLA-C、HLA-DP、HLA-DQ、およびHLA-DR)細胞表面タンパク質である。ヒトは、父系遺伝子に由来する6種類の分子種および母系遺伝子に由来する6種類の分子種、すなわち、合計で6対を発現することが知られている。より具体的には、一般的体細胞は、MHCクラスIに属する合計3対のみ、すなわちHLA-A、HLA-BおよびHLA-Cを発現し、免疫細胞は、MHCクラスIおよびMHCクラスIIの総和である合計6対を発現する。 HLA表面抗原の役割は、細胞中に存在するタンパク質の断片を細胞表面に提示し、かつ身体内で生じ得る感染または突然変異が、免疫細胞により検出されることを可能にすることである。このために、それらは抗原提示タンパク質とも称される。 骨髄移植をはじめとする、細胞療法または組織移植を行なう場合に、これらの抗原提示タンパク質が自己由来でなければ、それらは移植レシピエントの身体中に存在する免疫細胞の主要な標的になる。これは、各人がそれぞれのHLA遺伝子に対して多数の遺伝子多型を有するからである。例えば、ドナーのHLA-A遺伝子とレシピエントのHLA-A遺伝子は同一ではないので、レシピエントの身体中の免疫細胞は差異を認識し、ドナー細胞を攻撃する。最終的には、このことは、免疫拒絶による移植の失敗を引き起こす。この現象は、HLA-A遺伝子ならびにHLA-B遺伝子、HLA-C遺伝子、HLA-DP遺伝子、HLA-DQ遺伝子、およびHLA-DR遺伝子のすべてに適用可能である。現在までに蓄積されている臨床的経験から、HLA遺伝子の6対すべて(MHCクラスIおよびクラスII)をマッチングさせずに、多数の多型を有するHLA-A、HLA-BおよびHLA-DRB1の3対(または、HLA-Cまで含めた4対)をマッチングさせることによってさえ、移植の著しい成功率を確実にできることが知られている。 これに関して、本発明は、免疫適合性抗原が遺伝子欠失または改変によりホモ接合様遺伝子型または半接合遺伝子型を有する免疫適合性細胞を作製することが可能な方法を提供することを特徴とする。 本発明では、「免疫適合性抗原のホモ接合」との用語は、ドナーから父系および母系で継承されたHLA-A遺伝子、HLA-B遺伝子、およびHLA-DR遺伝子から選択される1種、2種または3種の遺伝子型が、全く同じHLA遺伝子型を有することを意味する。具体的には、免疫適合性抗原のホモ接合は、それぞれのHLA-A遺伝子およびHLA-B遺伝子の遺伝子型が完全に同じであることを含むことができるが、これに限定されない。また、HLA-DR遺伝子を含む場合、免疫適合性抗原のホモ接合は、それぞれHLA-A遺伝子、HLA-B遺伝子、およびHLA-DR遺伝子の遺伝子型が完全に同じであることを含むことができるが、それに限定されることを意図しない。 より具体的な非限定的な例に関して、[HLA-A*11(本明細書中、以下では、HLAは省略される)、B*51、DRB1*16(父系)/A*11、B*51、DRB1*16(母系)]を有するドナー由来細胞(父系および母系HLA遺伝子型が同じ)が、免疫適合性抗原についてホモ接合であり得る。この場合、6対のうちの3種類のみが同一である、HLA遺伝子型のすべての組み合わせのレシピエントに対して移植が可能であり、[A*11、B*51、DRB1*16(父系)/A*24、B*34、DRB1*08(母系)]のレシピエント、[A*11、B*15、DRB1*04(父系)/A*24、B*51、DRB1*16(母系)]のレシピエント、[A*03、B*08、DRB1*16(父系)/A*11、B*51、DRB1*09(母系)]のレシピエント、または[A*02、B*51、DRB1*07(父系)/A*11、B*44、DRB1*16(母系)]のレシピエントなどである。90%超の人々に対する免疫適合性細胞療法のためには、免疫適合性ホモ接合抗原を担持する約200種類の細胞株が必要であるとの報告がある[Taylor C, Banking on human embryonic stem cells: estimating the number of donor cell lines needed for HLA matching, 2005, Lancet, 366: 2019-2025]。したがって、HLA遺伝子型スクリーニングを通じて、互いに異なる免疫適合性抗原のホモ接合を有する200名のドナーを見出す場合には、90%超に対して移植可能な免疫適合性細胞株を前もって確保することができるが、そのような多数の人々に対してHLA遺伝子スクリーニングを行なうことは、非常に困難である。 上記の課題を解決するための一態様では、本発明者らは、遺伝子編集、ゲノム編集またはゲノム操作と称される方法を用いてホモ接合様細胞を作製するための方法を開発した。 本発明では、「ホモ接合様」との用語は、1対の特定のヘテロ接合対立遺伝子中で、1個の対立遺伝子をノックアウトまたはノックインすることにより、1個の対立遺伝子のみを有することを意味する。本発明の目的のために、ホモ接合様とは、HLA-A、HLA-BおよびHLA-DRからなる群より選択される1種、2種、または3種の遺伝子が1個の対立遺伝子のみを有する状態を意味する。より具体的には、本発明では、ホモ接合様とは、HLA-A遺伝子、HLA-B遺伝子および任意によりHLA-DR遺伝子が1個の対立遺伝子のみを有する状態であり得るが、これに限定されない。 本発明では、「免疫適合性細胞」とは、免疫適合性抗原、具体的には、HLA-A遺伝子、HLA-B遺伝子、およびHLA-DR遺伝子からなる群より選択される1種、2種、または3種の対立遺伝子が、ホモ接合様として存在する細胞であり得るが、特にこれに限定されない。より具体的には、HLA-A遺伝子、HLA-B遺伝子および任意によりHLA-DR遺伝子がホモ接合様として存在し得る細胞であり得る。 さらに、免疫適合性細胞中のHLA-DR遺伝子は、両方の対立遺伝子が完全に除去されている(ノックアウトされた)ものであり得るが、これに限定されない。この場合、免疫適合性細胞は、HLA-DR遺伝子の1対の対立遺伝子がノックアウトされている細胞、またはHLA-A遺伝子もしくはHLA-B遺伝子のうちの一方または両方がヘテロ接合である単離された細胞での遺伝子編集によって、HLA-A遺伝子もしくはHLA-B遺伝子のそれぞれの1個の対立遺伝子を欠失または改変することにより作製できる。あるいは、HLA-A遺伝子もしくはHLA-B遺伝子のうちの一方または両方がヘテロ接合である単離された細胞にて、HLA-A遺伝子もしくはHLA-B遺伝子のそれぞれの1個の対立遺伝子を遺伝子編集により欠失または改変し、それに続いて1対のHLA-DR遺伝子を欠失させる。また、本発明では、免疫適合性細胞中のHLA-A、HLA-BおよびHLA-DRから選択される1種以上の遺伝子が、両方の対立遺伝子が完全に除去されている(ノックアウトされた)ものであり得る。しかしながら、本発明は上記の例に限定されることを意図しない。 これにより、6対のうち、2種のみまたは1種のみの同一HLA遺伝子型の組み合わせを有するレシピエントに移植できる細胞を取得することができる。 さらに、本発明のプロセスに従えば、主要組織適合性抗原遺伝子の一方(父系または母系)の対立遺伝子が遺伝子編集により欠失または改変される場合、上記の通りに遺伝学的にホモ接合様細胞を取得することができる。したがって、それぞれの対立遺伝子が1つずつノックアウトまたはノックインされている、そうして取得された細胞が収集される場合、最終的に、ホモ接合効果を示す数種類の細胞を、1名のドナーの細胞から取得できる(図1〜3を参照されたい)。つまり、90%超の人々に移植可能である200種類超の免疫適合性細胞を取得するという大きな利点を提供できる。 本発明の1つの具体的な実施形態では、免疫適合性細胞は、ヘテロ接合遺伝子の1個または2個の対立遺伝子が、遺伝子欠失または改変により編集されているものであり得る。特に、欠失はノックアウトにより行なうことができ、改変はノックインにより行なうことができるが、これに限定されない。 ゲノム編集/遺伝子編集の技術は、ヒト細胞をはじめとする動物細胞および植物細胞のゲノム配列に標的特異的突然変異を導入可能なものであり、特定の遺伝子をノックアウトもしくはノックインでき、またはタンパク質を生成しない非コードDNA配列中でさえ突然変異を導入できる。本発明の方法は、ゲノム編集または遺伝子編集の技術を通じて、免疫適合性細胞を作製できる。 本発明の1つの具体的な実施形態では、遺伝子編集技術は、標的特異的ヌクレアーゼを用いることを特徴とする。 本発明では、「標的特異的ヌクレアーゼ」との用語は、対象となるゲノム上のDNAの特異的箇所を認識および切断することが可能なヌクレアーゼを意味し得る。ヌクレアーゼとしては、ゲノム上の特異的標的配列を認識するドメインとそれを切断するドメインとが融合されているヌクレアーゼが挙げられる。その例としては、限定するものではないが、メガヌクレアーゼ、または遺伝子操作ヌクレアーゼ、特にゲノム上の特異的標的配列を認識するドメインである植物病原体遺伝子由来の転写活性化因子様(TAL)エフェクターと切断ドメインとが融合されている転写活性化因子様エフェクターヌクレアーゼ(TALEN)、ジンクフィンガーヌクレアーゼ、またはCRISPR微生物免疫系由来のRGEN(RNA誘導型遺伝子操作ヌクレアーゼ(RNA-guided engineered nuclease))が挙げられる。本発明の目的のためにRGENを用いる方法は、シンプルであり、かつより望ましい結果をもたらすことができるが、特にこれに限定されることを意図しない。さらに、本発明の目的のために、上述の遺伝子編集を、HLA-A特異的ヌクレアーゼ、HLA-B特異的ヌクレアーゼまたはHLA-DR特異的ヌクレアーゼを用いて行なうことができ、ヌクレアーゼは好ましくは遺伝子操作ヌクレアーゼであるが、これに限定されない。 ヌクレアーゼ、具体的には遺伝子操作ヌクレアーゼを用いてノックアウトまたはノックインプロセスを行なう場合、ヌクレアーゼ以外にドナーDNAを必ずしも用いないノックアウトプロセスとは異なり、ノックインプロセスはヌクレアーゼと共にドナーDNAを用いる。ドナーDNAとは、ヌクレアーゼにより切断される染色体上の位置に導入される遺伝子を含むDNAを意味する。ドナーDNAは、組み換えのための左側隣接アームおよび右側隣接アームを含むことができる。さらに、ドナーDNAは、任意により選択マーカーを含むことができるが、これに限定されない。 標的特異的ヌクレアーゼは、ヒト細胞をはじめとする動物細胞および植物細胞のゲノム中の特異的ヌクレオチド配列を認識し、それにより二本鎖切断(DSB)を引き起こす。DSBは、細胞内で、相同組み換えまたは非相同末端結合(NHEJ)機構により効率よく修復される。このプロセス中、所望の突然変異を標的位置に導入することができる。標的特異的ヌクレアーゼは、人工的なまたは遺伝子操作された、天然には存在しないものであり得る。 ヌクレアーゼは、ジンクフィンガーヌクレアーゼ(ZFN)であり得る。 ZFNは、選択された遺伝子、および切断ドメインまたは切断半ドメイン中の標的部位に結合するように遺伝子操作されたジンクフィンガータンパク質を含む。ZFNは、ジンクフィンガーDNA結合性ドメインおよびDNA切断ドメインを含む人工的制限酵素であり得る。ここで、ジンクフィンガーDNA結合性ドメインは、選択された配列に結合するように遺伝子操作されているものであり得る。例えば、Beerli et al. (2002) Nature Biotechnol. 20:135-141; Pabo et al. (2001) Ann. Rev. Biochem. 70:313-340;Isalan et al, (2001) Nature Biotechnol. 19: 656-660;Segal et al. (2001) Curr. Opin. Biotechnol. 12:632-637;およびChoo et al. (2000) Curr. Opin. Struct. Biol. 10:411-416を、参照により本明細書中に組み入れることができる。天然に存在するジンクフィンガータンパク質と比較して、遺伝子操作ジンクフィンガー結合性ドメインは、新規の結合特異性を有することができる。遺伝子操作法としては、合理的設計および様々なタイプの選択が挙げられるが、これに限定されない。合理的設計としては、例えば、三塩基(または四塩基)ヌクレオチド配列、および個々のジンクフィンガーアミノ酸配列を含むデータベースの使用が挙げられる。このとき、各三塩基または四塩基ヌクレオチド配列が、特定の三塩基または四塩基配列に結合する1種以上のジンクフィンガーの配列と組み合わせられる。 標的配列の選択、融合タンパク質(およびそれをコードするポリヌクレオチド)の設計および構築は当業者に公知であり、かつ米国特許出願公開第2005/0064474号および同第2006/0188987号(それらの内容全体が参照により本明細書中に組み入れられる)に詳細に記載されている。さらに、これらの参考文献および関連分野の他の参考文献に開示されている通り、ジンクフィンガードメインおよび/または多重ジンクフィンガータンパク質を、いずれかの好適なリンカー配列、例えば、5個以上のアミノ酸長を含むリンカーにより一緒に連結することができる。6個以上のアミノ酸長のリンカー配列の例は、米国特許第6,479,626号;同第6,903,185号;および同第7,153,949号に開示されている。本明細書中に記載されるタンパク質は、タンパク質の各ジンクフィンガーの間に、好適なリンカーのいずれかの組み合わせを含むことができる。 また、ZFNなどのヌクレアーゼは、ヌクレアーゼ活性部分(すなわち、切断ドメインおよび切断半ドメイン)を含む。公知である通り、例えば、ジンクフィンガーDNA結合性ドメインとは異なるヌクレアーゼの切断ドメインの場合など、切断ドメインはDNA結合性ドメインに対して異種であり得る。異種切断ドメインは、いずれかのエンドヌクレアーゼまたはエキソヌクレアーゼ由来であり得る。切断ドメインが由来し得る例示的エンドヌクレアーゼとしては、制限エンドヌクレアーゼおよびメガヌクレアーゼが挙げられるが、これに限定されない。 同様に、切断半ドメインは、上述の通り切断活性のために二量体化を必要とするいずれかのヌクレアーゼまたはその一部分に由来し得る。融合タンパク質が切断半ドメインを含む場合、典型的には、2個の融合タンパク質が切断のために必要である。あるいは、2つの切断半ドメインを含む単一タンパク質を用いることができる。2つの切断半ドメインは、同じエンドヌクレアーゼ(またはその機能的断片)に由来するものでもあり得、またはそれぞれの切断半ドメインが異なるエンドヌクレアーゼ(またはその機能的断片)に由来し得る。さらに、2個の融合タンパク質の標的部位を並べて、その標的部位への2個の融合タンパク質の結合により、半切断ドメインが空間的に互いに向き合うようにして、それにより、切断半ドメインが、例えば二量体化により、機能的切断ドメインを形成することが好ましい。したがって、一実施形態では、標的部位の隣り合う縁部(neighboring edge)は、5〜8ヌクレオチドまたは15〜18ヌクレオチドだけ隔たる。しかしながら、いずれの整数個のヌクレオチドまたはヌクレオチド対でも、2箇所の標的部位の間に介在することができる(例えば、2〜50ヌクレオチド対またはそれ以上)。一般的に、切断部位は標的部位の間に配置される。 制限エンドヌクレアーゼ(制限酵素)は多数の生物種に存在し、配列特異的にDNAに結合し(標的部位で)、それにより結合部位で、またはその近傍でDNAを切断することができる。一部の制限酵素(例えば、IIS型)は認識部位から離れた部位でDNAを切断し、かつ分離可能な結合性ドメインおよび切断可能ドメインを含む。例えば、IIS型酵素であるFokIは、一方の鎖上では認識部位から9ヌクレオチドかつ残りの一方の鎖上では認識部位から13ヌクレオチドでのDNAの二本鎖切断を触媒する。つまり、一実施形態では、融合タンパク質は、IIS型制限酵素由来の少なくとも1つの切断ドメイン(または切断半ドメイン)および1つ以上のジンクフィンガードメイン(遺伝子操作されていてもされていなくてもよい)を含む。 本発明では、「TALEN」との用語は、DNAの標的領域を認識および切断できるヌクレアーゼを意味する。TALENは、TALEドメインおよびヌクレオチド切断ドメインを含む融合タンパク質を意味する。本発明では、「TALエフェクターヌクレアーゼ」および「TALEN」との用語は、相互に交換可能に用いることができる。TALエフェクターは、様々な植物種がキサントモナス属(Xanthomonas)細菌に感染した場合に、それらのIII型分泌系を介して分泌されるタンパク質として知られてきた。タンパク質は、宿主植物中でプロモーター配列と会合して、それにより細菌感染を助ける植物遺伝子の発現を活性化することができる。タンパク質は、34個以下の様々な数のアミノ酸反復からなる中央反復ドメインを介して植物DNA配列を認識する。したがって、TALEは、ゲノム操作でのツールとして用いられる新規プラットフォームであり得ると考えられる。しかしながら、ゲノム編集活性を有する機能的TALENを作製するためには、現在までに知られていないいくつかの重要なパラメータを、以下の通りに定義しなければならない:(i) TALEの最小限のDNA結合性ドメイン、(ii) 1箇所の標的領域を形成する2つの半部位の間のスペーサーの長さ、および(iii) FokIヌクレアーゼドメインをdTALEに連結するリンカーまたは融合連結部。 本発明では、TALEドメインとは、配列特異的に1つ以上のTALE反復モジュールを介してヌクレオチドに結合するタンパク質ドメインを意味する。TALEドメインは、少なくとも1個のTALE反復モジュールを含み、より詳細には1〜30個のTALE反復モジュールを含むが、これに限定されない。本発明では、「TALエフェクタードメイン」および「TALEドメイン」との用語は、相互に交換可能に用いられる。TALEドメインは、TALE反復モジュールの半分を含むことができる。TALENに関して、国際公開第2012/093833号または米国特許出願公開第2013-0217131号に開示される内容全体が、参照により本明細書中に組み入れられる。 本発明では、「RGEN」との用語は、標的DNA特異的ガイドRNAおよびCasタンパク質を構成要素として含むヌクレアーゼを意味する。すなわち、例えば、本発明でのRGENは、HLA-A遺伝子、HLA-B遺伝子、またはHLA-DR遺伝子の特定の配列に特異的に結合するガイドRNA、およびCasタンパク質を含むことができるが、これに限定されない。 本発明では、RGENは、標的DNA特異的ガイドRNAまたはガイドRNAをコードするDNA;および分離されたCasタンパク質またはCasタンパク質をコードする核酸の形態で細胞に適用することができるが、これに限定されない。 本発明のより具体的な実施形態では、RGENは、(1) 標的DNA特異的ガイドRNAおよび分離されたCasタンパク質、ならびに(2) ガイドRNAをコードするDNAおよびCasタンパク質をコードする核酸の形態で細胞に適用することができる。 上記(1)の形態で細胞にRGENを移行させることは、「RNP送達」と称されるが、これに限定されない。 単離されたガイドRNAの形態で適用される場合、ガイドRNAをin vitroで転写することができるが、これに限定されない。 また、ガイドRNAをコードするDNAおよびCasタンパク質をコードする核酸は、単離された核酸そのものとして用いることができ、かつガイドRNAおよび/またはCasタンパク質を発現するための発現カセットを含むベクターの形態で存在することができるが、これに限定されない。 ベクターは、ウイルスベクター、プラスミドベクターまたはアグロバクテリウムベクターであり得、ウイルスベクターのタイプとしてはAAV(アデノ随伴ウイルス)が挙げられるが、これに限定されない。 ガイドRNAをコードするDNAおよびCasタンパク質をコードする核酸は、それぞれ個別のベクター中に存在するか、または同じベクター中に存在し得るが、これに限定されない。 上記の実施形態のそれぞれは、本明細書中に記載されるさらに具体的な実施形態に関してさえも、完全に適用することができる。 本発明では、RGENは、HLA-A遺伝子、HLA-B遺伝子もしくはHLA-DR遺伝子の特定の配列に特異的に結合するガイドRNAまたはこれをコードするDNA、およびCasタンパク質またはこれをコードする核酸配列を含むことができるが、これに限定されない。本発明では、「Casタンパク質」との用語は、CRISPR/Cas系の主要なタンパク質構成要素であり、かつ活性化型エンドヌクレアーゼまたはニッカーゼ(nickase)を形成可能なタンパク質である。 Casタンパク質は、crRNA(CRISPR RNA)およびtracrRNA(trans活性化crRNA)との複合体を形成することができ、それによりその活性を示す。 Casタンパク質またはそれに対する遺伝子情報は、NCBI(米国国立生物工学情報センター)のGenBankなどの公知のデータベースから得られる。より具体的には、Casタンパク質は、Cas9タンパク質であり得る。さらに、Casタンパク質は、ストレプトコッカス属(Streptococcus)由来タンパク質、特に化膿レンサ球菌(Streptococcus pyogens)由来Casタンパク質、より詳細にはCas9タンパク質であり得る。また、Casタンパク質は、カンピロバクター属(Campylobacter)由来タンパク質、特にカンピロバクター・ジェジュニ由来Casタンパク質、より詳細にはCas9タンパク質であり得る。しかしながら、本発明は、上記の例に限定されることを意図しない。 さらに、本発明で用いられるCasタンパク質としては、天然に存在するタンパク質に加えて、ガイドRNAと協働して活性化されるエンドヌクレアーゼ、またはニッカーゼとして作用することが可能なその変異体が挙げられる。Cas9タンパク質の変異体は、触媒アスパラギン酸残基がいずれかの他のアミノ酸に交換されているCas9の突然変異タンパク質(mutein)であり得る。具体的には、他のアミノ酸はアラニンであり得るが、これに限定されない。 本発明では、Casタンパク質は組み換えタンパク質であり得る。 細胞、核酸、タンパク質またはベクターとの関連で用いる場合、「組み換え」との用語は、例えば、異種核酸もしくはタンパク質が導入されているか、生来型の核酸もしくはタンパク質が改変されているか、または細胞が改変型細胞から誘導されている、改変型細胞、核酸、タンパク質またはベクターを意味する。つまり、例えば、組み換えCasタンパク質は、ヒトコドン表を用いてCasタンパク質をコードするアミノ酸配列を再構築することにより作製することができる。 Casタンパク質またはそれをコードする核酸は、Casタンパク質が核の中での作用を許容する形態であり得る。 分離されたCasタンパク質はまた、細胞に導入するのが容易な形態であり得る。一例として、Casタンパク質を、細胞浸透性ペプチドまたはタンパク質導入ドメイン(protein transduction domain)に連結することができる。タンパク質導入ドメインは、ポリアルギニンまたはHIV由来TATタンパク質であり得るが、これに限定されない。上記の例に加えて様々な種類の細胞浸透性ペプチドまたはタンパク質導入ドメインがあることが当技術分野で周知であり、したがって当業者は上記のものに限定されることなく本発明に対して様々な例を適用できる。 また、Casタンパク質をコードする核酸は、核移行シグナル(NLS)配列をさらに含むことができる。つまり、Casタンパク質をコードする核酸を含む発現カセットは、NLS配列ならびにCasタンパク質を発現させるためのプロモーター配列などの調節配列を含むことができる。しかしながら、本発明はこれに限定されない。 Casタンパク質は、分離および/または精製を促進するタグに連結させることができる。一例として、Hisタグ、FlagタグもしくはS-タグなどの小型ペプチドタグ、またはGST(グルタチオンS-トランスフェラーゼ)タグ、MBP(マルトース結合性タンパク質)タグ等を目的に応じて連結させることができるが、これらに限定されない。 本発明では、「ガイドRNA」との用語は、特定の標的配列に特異的に結合する標的DNA特異的RNAを意味し、これはCasタンパク質に結合してCasタンパク質を標的DNAへと向かわせることができる。 本発明では、ガイドRNAは、2個のRNA、すなわちcrRNA(CRISPR RNA)およびtracrRNA(trans活性化crRNA)を構成要素として含む二重RNA(dual RNA)であるか;または標的DNA配列に対する相補的配列との塩基対をなすことができる配列を含む第1領域およびCasタンパク質と相互作用する配列を含む第2領域を含む形態であり得、より詳細にはcrRNAおよびtracrRNAの主要な部分が融合しているsgRNA(一本鎖RNA)であり得る。 sgRNAは、標的DNA配列に対する相補的配列との塩基対をなすことができる配列を有する部分(これはまたスペーサー領域、標的DNA認識配列、塩基対形成領域等とも称される場合がある)およびCasタンパク質結合性のためのヘアピン構造を含むことができる。より詳細には、sgRNAは、標的DNA配列に対する相補的配列との塩基対をなすことができる配列を有する部分、Casタンパク質結合性のためのヘアピン構造およびターミネーター配列を含むことができる。上記の構造は、5’から3’の順番で連続して存在することができる。しかしながら、これに限定されない。 ガイドRNAがcrRNAおよびtracrRNAの必須部分ならびに標的に対する相補的配列との塩基対をなすことができる部分を含む場合、いずれかのガイドRNAを本発明で用いることができる。 crRNAは標的DNAとハイブリダイズすることができる。 RGENは、Casタンパク質および二重RNAから構成されるか、またはCasタンパク質およびsgRNAから構成されることができる。さらに、RGENは、構成要素として、Casタンパク質をコードする核酸および二重RNAをコードする核酸を含むか;またはCasタンパク質をコードする核酸およびsgRNAをコードする核酸を含むことができるが、これらに限定されない。 ガイドRNA、特にcrRNAまたはsgRNAは、標的DNA配列に対する相補的配列との塩基対をなすことができる配列を含むことができ、さらに、crRNAまたはsgRNAの上流部分、特にsgRNAのcrRNAまたは二重RNAの5’末端に1個以上の追加のヌクレオチドを含むことができる。追加のヌクレオチドは、グアニン(G)であり得るが、これに限定されない。 より具体的には、本発明の遺伝子編集は、HLA-A遺伝子、HLA-B遺伝子もしくはHLA-DR遺伝子の特定の配列に特異的に結合するガイドRNAまたはガイドRNAをコードするDNA;およびCasタンパク質をコードする核酸またはCasタンパク質それ自体を、細胞に導入することにより行なうことができる。つまり、主要組織適合性抗原遺伝子の一方(父系または母系)の対立遺伝子を、既に記載された通り、ヌクレアーゼの1つであるCRISPR/Cas系を用いるRGEN法により除去し、これにより一方の対立遺伝子のみが残る。最終的に、遺伝子ホモ接合様効果を有する細胞が構築できる。 RGEN法によるHLA-DRB1遺伝子の対立遺伝子ノックアウトのために用いることができる標的配列は、すべてのヒトに共通に存在する保存された配列、例えば4HLA-DRB1に存在する5'-ATCCAGGCAGCATTGAAGTCAGG-3'(配列番号1)、5'-CCAGGCAGCATTGAAGTCAGGTG-3'(配列番号2)、5'-CCTTCCAGACCCTGGTGATGCTG-3'(配列番号3)、または5'-CCAGACCCTGGTGATGCTGGAAA-3'(配列番号4)を含むことができるが、これらに限定されない。 RGEN法によるHLA-A遺伝子の対立遺伝子ノックアウトのために用いることができる標的配列は、例えばHLA-Aエキソン4に存在する5'-CCCTGCGGAGATCACACTGACCT-3' (配列番号5)、5-CCTGCGGAGATCACACTGACCTG-3'(配列番号6)、5'-GAGACCAGGCCTGCAGGGGATGG-3'(配列番号7)、または5'-CACCTGCCATGTGCAGCATGAGG-3'(配列番号8)を含むことができるが、これらに限定されない。 RGEN法によるHLA-B遺伝子の対立遺伝子ノックアウトのために用いることができる標的配列は、例えばHLA-Bエキソン4に存在する5'-ACCCTGAGGTGCTGGGCCCTGGG-3'(配列番号9)、5'-GATCACACTGACCTGGCAGCGGG-3'(配列番号10)、5'-ACACTGACCTGGCAGCGGGATGG-3'(配列番号11)、5'-GACCTGGCAGCGGGATGGCGAGG-3'(配列番号12)、または5'-CCTTCTGGAGAAGAGCAGAGATA-3'(配列番号13)を含むことができるが、これらに限定されない。 本発明の一実施形態では、Cas9タンパク質およびHLA遺伝子の対立遺伝子ノックアウトを行なうために編集される対象である特定のHLA遺伝子標的配列を認識するsgRNAを細胞に移行させる方法が用いられた。 具体的には、該方法は、(1) Cas9タンパク質を細菌中で過剰発現させて精製し、かつ特定のHLA標的配列を認識するsgRNA(一本鎖ガイドRNA)をin vitroで生成させ、これらを細胞に移行させる方法;または(2) Cas9タンパク質およびsgRNAを発現するプラスミドDNAを細胞にトランスフェクトし、その中で発現させる方法であり得るが、これらに限定されない。 また、本発明に従って細胞にタンパク質、RNA、またはプラスミドDNAを移行させるための方法では、エレクトロポレーション、リポソーム、ウイルスベクター、ナノ粒子、およびタンパク質トランスロケーションドメイン(PTD)融合タンパク質法などの当技術分野で公知の様々な方法を用いることができるが、これらに限定されない。 さらに、本発明の方法は、脱分化された幹細胞(誘導型多能性幹細胞)、胚性幹細胞ならびにすべての細胞に適用することができる。つまり、これは、様々な細胞に適用できる技術として有利である。 方法はすべての細胞、すなわち、幹細胞(誘導型多能性幹細胞、胚性幹細胞、体細胞核移植由来胚性幹細胞、および成体幹細胞)および体細胞に適用できる。また、細胞はヒトに由来することもあるが、これに限定されない。 本明細書中で言及される成体幹細胞としては、ヒト胎児、新生児および成体の身体から取得できるすべての成体幹細胞、ならびに臍帯血幹細胞、胎盤幹細胞、ワルトンゼリー幹細胞、羊水幹細胞、羊膜上皮細胞、胚体外幹細胞およびそれらに由来する遺伝学的に改変された細胞が挙げられる。 さらに、本明細書中で言及される体細胞としては、胎児ならびに新生児および成体の身体から取得できるすべての細胞、ならびにそれらに由来する遺伝学的に改変された細胞が挙げられる。 HLA-A、HLA-BおよびHLA-DRのうちの2種以上の遺伝子がヘテロ接合遺伝子型を有する場合、またはHLA-A遺伝子およびHLA-B遺伝子がヘテロ接合遺伝子型を有する場合、本発明に係る免疫適合性細胞を作製する方法は、遺伝子編集により対応する細胞からヘテロ接合遺伝子の対立遺伝子を逐次的もしくは同時に欠失または改変することができ、特に逐次的に行なうことができるが、これに限定されない。 さらに、HLA-A遺伝子、HLA-B遺伝子およびHLA-DR遺伝子がすべてヘテロ接合遺伝子型を有する場合、またはHLA-A遺伝子およびHLA-B遺伝子がヘテロ接合遺伝子型を有する場合、作製方法は、遺伝子編集により分離された細胞からそれぞれの遺伝子の1個もしくは2個の対立遺伝子を欠失または改変することができ、それぞれの遺伝子の対立遺伝子を遺伝子編集により逐次的もしくは同時に欠失または改変することができる。また、作製方法は、遺伝子編集により、HLA-A遺伝子、HLA-B遺伝子およびHLA-DR遺伝子がすべてヘテロ接合遺伝子型を有する分離された細胞にてHLA-DR遺伝子の1対の対立遺伝子を除去するステップ、ならびに遺伝子編集によりHLA-A遺伝子およびHLA-B遺伝子のそれぞれの1個もしくは2個の対立遺伝子を除去または改変するステップを含むことができるが、これに限定されない。DRB1はMHCクラスIIタンパク質のうちの1種としてB細胞などの一部の細胞でしか発現されないので、二重対立遺伝子ノックアウトが可能であること、およびHLA組み合わせのタイプが簡略化できることが有利であるが、これらに限定されない。本方法によれば、1種類の細胞で4種類の異なるホモ接合様細胞を作製することができる。 本発明の具体的な実施形態では、胚性幹細胞および誘導型多能性幹細胞が、Drb1遺伝子を破壊するために二重対立遺伝子ノックアウトに供され(図9)、続いて、HLA-A遺伝子およびHLA-B遺伝子のそれぞれの1個の対立遺伝子が遺伝子編集により除去されて、それにより、4種類の異なるホモ接合様細胞が作製された(図14および図15)。 さらに、本発明の作製方法は、遺伝子編集により、HLA-A遺伝子、HLA-B遺伝子およびHLA-DR遺伝子に加えて、HLA-C、HLA-DPおよびHLA-DQから選択される1種以上の遺伝子の対立遺伝子を除去または改変するステップもさらに含むことができる。この遺伝子編集に対して、既に記載されたことが適用されることは明らかである。 また、本発明の作製方法は、作製された細胞のHLA型を分析するステップをさらに含むことができる。このステップは、遺伝子型を分析するための当技術分野で公知の様々な方法を用いて行なうことができる。例えば、このステップは、PCRにより対象となるHLA遺伝子の標的配列領域を増幅し、続いてその配列を分析する方法を通じて行なうことができるが、これに限定されない。 さらに、上記の方法は、作製された免疫適合性細胞群から、移植される対象であるHLA型を有する細胞を選択するステップをさらに含むことができる。そのような選択ステップでは、これはHLA遺伝子型の分析ステップに先立つことができる。HLA遺伝子型が分析される場合に、所望の細胞を分析結果によって選択することができる。このプロセスは、レシピエントに対して適切なHLA型の細胞を提供することができる。 本発明の別の実施形態では、作製方法により作製される免疫適合性細胞が提供される。 作製方法の詳細は、上記の通りである。 別の実施形態では、本発明は、作製方法により作製される免疫適合性細胞を含む細胞集団を提供する。 この作製方法の詳細は、上記の通りである。上記の細胞集団はまた、細胞バンクとも称される場合がある。 別の実施形態では、本発明は、以下のステップを含む、免疫適合性細胞集団を作製するための方法を提供する:(a) HLA-A、HLA-BおよびHLA-DRB1から選択される免疫適合性抗原遺伝子のうちの少なくとも1種がヘテロ接合遺伝子型を有する単離細胞中での、またはHLA-AおよびHLA-Bから選択される免疫適合性抗原遺伝子のうちの少なくとも1種がヘテロ接合遺伝子型である単離細胞中での遺伝子欠失もしくは改変により、免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップ;および(b) ステップ(a)で作製された細胞を収集するステップ。 ステップ(a)の詳細は、既に記載された通りである。また、細胞集団は細胞バンクとも称される場合がある。 ステップ(b)では、種々のHLA遺伝子型を有する細胞の集団を、ステップ(a)で作製された細胞を収集することにより構築することができる。 また、ステップ(a)を行なった後でステップ(b)を行なう前に、本発明の作製方法は、以下のステップをさらに含むことができる:(a’) ステップ(a)から取得される単離細胞のHLA遺伝子型を特定し、それによりHLA遺伝子型が特定された細胞集団、すなわち、細胞集団を作製するステップ。 本発明は、例えば以下の実施形態を包含する: [実施形態1]ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種がヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む、免疫適合性細胞の作製方法。 [実施形態2]免疫適合性抗原遺伝子HLA-AおよびHLA-Bのうちの少なくとも1種がヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態3]遺伝子欠失が遺伝子ノックアウトにより行われる、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態4]遺伝子改変が遺伝子ノックインを介して行われる、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態5]遺伝子編集が、HLA-A特異的遺伝子操作ヌクレアーゼ、HLA-B特異的遺伝子操作ヌクレアーゼ、またはHLA-DR特異的遺伝子操作ヌクレアーゼを用いて行われる、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態6]遺伝子操作ヌクレアーゼが、ジンクフィンガーヌクレアーゼ(ZFN)、転写活性化因子様エフェクターヌクレアーゼ(TALEN)、およびRNA誘導型遺伝子操作ヌクレアーゼ(RGEN)からなる群より選択される、実施形態5に記載の免疫適合性細胞の作製方法。 [実施形態7]RGENが、HLA-A遺伝子、HLA-B遺伝子、またはHLA-DR遺伝子の特定の配列に特異的に結合するガイドRNA、およびCasタンパク質を含む、実施形態6に記載の免疫適合性細胞の作製方法。 [実施形態8]遺伝子編集が、HLA-A遺伝子、HLA-B遺伝子、もしくはHLA-DR遺伝子の特定の配列に特異的に結合するガイドRNA、またはガイドRNAをコードするDNA;およびCasタンパク質をコードする核酸またはCasタンパク質それ自体を細胞に導入するステップにより行われる、実施形態7に記載の免疫適合性細胞の作製方法。 [実施形態9]ガイドRNAが、crRNAおよびtracrRNAを含む二重RNA、または一本鎖ガイドRNAの形態である、実施形態8に記載の免疫適合性細胞の作製方法。 [実施形態10]Casタンパク質がCas9タンパク質である、実施形態8に記載の免疫適合性細胞の作製方法。 [実施形態11]Casタンパク質がストレプトコッカス属(Streptococcus)に由来する、実施形態8に記載の免疫適合性細胞の作製方法。 [実施形態12]免疫適合性細胞中の免疫適合性抗原遺伝子がホモ接合様または半接合である、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態13]HLA-A遺伝子、HLA-B遺伝子、およびHLA-DR遺伝子すべてがヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子編集により、HLA-A遺伝子、HLA-B遺伝子およびHLA-DR遺伝子のいずれかの単一対立遺伝子ノックアウトを行なうステップを含む、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態14]HLA-DR遺伝子の1対の対立遺伝子のノックアウトを行なうステップ、ならびにHLA-A遺伝子およびHLA-B遺伝子の一方または両方がヘテロ接合である単離された細胞中での遺伝子編集によりHLA-A遺伝子およびHLA-B遺伝子のいずれかの1個もしくは2個の対立遺伝子を除去または改変するステップを含む、実施形態1または2に記載の免疫適合性細胞の作製方法。 [実施形態15]細胞が幹細胞または体細胞である、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態16]幹細胞が、誘導型多能性幹細胞、胚性幹細胞、体細胞核移植由来胚性幹細胞、または成体幹細胞である、実施形態15に記載の免疫適合性細胞の作製方法。 [実施形態17]遺伝子編集により、HLA-C、HLA-DP、およびHLA-DQから選択される1種以上の遺伝子の対立遺伝子を除去するステップをさらに含む、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態18]免疫適合性細胞を含む細胞集団を作製するためのものである、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態19]作製された細胞のHLA型を分析するステップをさらに含む、実施形態1に記載の免疫適合性細胞の作製方法。 [実施形態20]実施形態1〜19のいずれかに記載の方法により作製される免疫適合性細胞を含む細胞集団。 [実施形態21]以下のステップ: (a) ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種がヘテロ接合遺伝子型を有する、単離された細胞中での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップ;および (b) ステップ(a)で作製される細胞を収集するステップ を含む、免疫適合性細胞集団の作製方法。 [実施形態22]ステップ(a)を行なった後でステップ(b)を行なう前に、以下のステップ: (a’) ステップ(a)から取得される単離細胞のHLA遺伝子型を特定するステップ をさらに含む、実施形態21に記載の免疫適合性細胞集団の作製方法。 [実施形態23]ヒト白血球抗原(HLA)-A、HLA-BおよびHLA-DRから選択される免疫適合性抗原遺伝子のうちの少なくとも1種を含む単離された細胞での遺伝子欠失または改変により、1種以上の免疫適合性抗原遺伝子の1個または2個の対立遺伝子を編集するステップを含む、免疫適合性細胞の作製方法。 [実施形態24]単離された細胞が、ヘテロ接合またはホモ接合である免疫適合性抗原遺伝子を含むことができる、実施形態23に記載の免疫適合性細胞の作製方法。 [実施形態25]編集ステップが2個の対立遺伝子の編集を含むことができる、実施形態23に記載の免疫適合性細胞の作製方法。 発明の形態 以下において、本発明を実施例により詳細に説明する。しかしながら、実施例は本発明を例示することのみが意図され、本発明を限定することは意図されない。 それに関して適合させることが最も重要であるHLA分子は、クラスI HLA-A、HLA-BおよびクラスII HLA-DRである。HLA-Aホモ接合ヒト多能性幹細胞ライブラリーを作製するために、本発明者らはCas9をDrb1遺伝子、HLA-A遺伝子およびHLA-B遺伝子に標的化するためのgRNAを設計し、ES細胞およびiPS細胞の両方で部位特異的突然変異を指向する能力について試験した。図1は、本発明者らの戦略をまとめた模式図である。 材料および方法 細胞培養 hESCおよびiPSCを、Geltrex(Invitrogen社)コーティングしたプレート上で、10μM ROCK阻害剤Y27632(Santa Cruz社)を添加したE8培地(Invitrogen社)中にて24時間維持した。細胞を、4日間〜5日間毎にEDTAを用いて継代した。 ガイドRNA RNAを、製造業者のマニュアルに従って、MEGAshortscript T7キット(Ambion社)を用いてin vitroで転写させた。sgRNAのための鋳型は、2種類の相補的オリゴヌクレオチドのアニーリングおよび伸長により生成させた。ガイドRNA配列は、標的DNAの同じ配列を有し、かつその配列の3'末端が「NGG」である23nt配列である。 トランスフェクション hESCおよびiPSCを、製造業者のプロトコールに従ってプログラムCB-150を用いてAmaxa P3 Primary Cell 4DNucleofector Kitによりトランスフェクトした。簡潔には、2×10⁵個の細胞に、in vitroで転写したsgRNA(40μg)と予め混合したToolgen社からのCas9タンパク質(30μg)をトランスフェクトした。Cas9タンパク質を、ヌクレアーゼ不含水に溶解させたsgRNAと混合し、室温で10分間インキュベートした。10μL以下のCas0-sgRNA混合物を100μLのNucleofection溶液に添加した。細胞を、トランスフェクションの3日後に分析した。 T7E1アッセイ ゲノムDNAを、DNeasy Blood & Tissue Kit(QIAGEN社)を用いて抽出した。Cas9標的部位を含むPCRアンプリコンを、PicoMaxx High Fidelity PCR system(Agilent社)を用いて生成させた。PCRアンプリコンを加熱により変性させ、サーマルサイクラーを用いて、ヘテロ二重鎖DNAを形成させるためにアニーリングさせ、続いてT7エンドヌクレアーゼ1(New England Biolabs社)を用いて37℃で20分間消化し、次にアガロースゲル電気泳動を用いて分析した。配列決定分析のために、PCR産物を、TAクローニングベクター(pGEM-T Easy Vector;Promega社)を用いるサブクローニングのために用いた。再構築されたプラスミドを精製し、個々のクローンを配列決定した(Macrogen社)。 アルカリホスファターゼ染色 アルカリホスファターゼ染色は、Alkaline Phosphatasees Staining Kit II(Stemgent社)を製造業者の使用説明書に従って用いて行なった。細胞を、4%パラホルムアルデヒド中で固定し、Tris緩衝生理食塩液/0.05%Tween 20(Sigma社)を用いて洗浄し、AP染色溶液を用いて染色した。 免疫蛍光法 hESCを、4%ホルムアルデヒドを用いて固定し、リン酸緩衝生理食塩液(PBS;Invitrogen社)中の0.1%Triton X-100を用いて室温にて30分間透過処理した。続いて、細胞を、PBS中の0.03%Triton X-100(洗浄バッファー)を用いて洗浄した。固定したサンプルを、洗浄バッファー中に溶解させた5%ウシ血清アルブミン溶液を用いて1時間ブロッキングし、それから一次抗体と共に4℃にて24時間インキュベートした。サンプルを、洗浄バッファーを用いて洗浄し、続いて FITCコンジュゲート化二次抗体(Molecular Probes社)と共に2時間インキュベートした。スライドを、細胞核を染色するためにDAPI(Vector Laboratories社)を用いて対比染色した。 標的化ディープシーケンス(targeted deep sequencing) 標的結合(on-target)部位および考えられる標的解離(off-target)部位に及ぶゲノムDNAセグメントを、Phusionポリメラーゼ(New England BioLabs社)を用いて増幅した。生じたPCRアンプリコンを、Illumina MiSeqを用いるペアエンドシーケンス(paired-end sequencing)に供した。 核型決定(karyotyping) 核型決定は、GenDix社により分析した。 実施例1:HLA-A遺伝子、HLA-B遺伝子およびHLA-DRB1遺伝子の単一対立遺伝子ノックアウトを介したホモ接合様細胞の作製 ヒト白血球抗原(HLA)-A遺伝子、HLA-B遺伝子およびHLA-DR遺伝子がヘテロ接合遺伝子型を有する単離細胞中でのゲノム編集を通じて、HLA-A遺伝子、HLA-B遺伝子およびHLA-DRB1遺伝子の単一対立遺伝子ノックアウトを、ヌクレアーゼを用いて行ない、それにより、HLA-A遺伝子、HLA-B遺伝子およびHLA-DRB1遺伝子がホモ接合様特性を有する8種類の細胞を構築した。上記のプロセスは、図2の模式図に示した。 実施例2:HLA-A遺伝子およびHLA-B遺伝子の単一対立遺伝子ノックアウトならびにHLA-DRB1遺伝子の二重対立遺伝子ノックアウトを介したホモ接合様細胞の作製 HLA-A遺伝子、HLA-B遺伝子およびHLA-DRB1遺伝子がヘテロ接合遺伝子型を有する単離細胞中でのゲノム編集を通じて、HLA-DRB1遺伝子の1対の対立遺伝子を除去し、HLA-A遺伝子およびHLA-B遺伝子の単一対立遺伝子ノックアウトを、ヌクレアーゼを用いて行ない、それにより、HLA-A遺伝子およびHLA-B遺伝子がホモ接合様特性を有する4種類の細胞を構築した。上記のプロセスは、図3の模式図に示した。 実施例3:ヒト誘導型多能性幹細胞へのCas9タンパク質およびHLA-DRB1特異的ガイドRNA(DRB1 gRNA)を発現するプラスミドの導入 Cas9タンパク質およびDRB1 gRNAを発現するプラスミドDNAを、エレクトロポレーションによりヒト誘導型多能性幹細胞#12(iPSC#12)に送達した。続いて、iPSC#12由来の得られたコロニーのゲノムDNAを抽出した。その後、DRB1遺伝子内の標的配列でindel(挿入または欠失)が誘導されたかを、T7エンドヌクレアーゼI(T7E1)突然変異検出アッセイにより分析して、結果を図4に示す。 図4に示される通り、分析の結果として、23種類のiPSC細胞株のうち、indelがDRB1遺伝子の両方(父系および母系)の対立遺伝子で誘導されているiPSCは7種類の細胞株であると判定され(赤色矢印);indelが対立遺伝子#1(対立遺伝子1と示される)で誘導されているiPSCは1種類の細胞株であると判定され(紫色矢印);indelが対立遺伝子#2(対立遺伝子2と示される)で誘導されているiPSCは4種類の細胞株であると判定された(青色矢印)。 実施例4:エレクトロポレーションを用いたヒト誘導型多能性幹細胞へのCas9タンパク質およびHLA-DRB1特異的ガイドRNA(DRB1 gRNA)の導入 プラスミドDNAではなく、Cas9タンパク質およびHLA-DRB1 gRNAを、エレクトロポレーションによりヒト誘導型多能性幹細胞#8(iPSC#8)に送達した。続いて、iPSC#8由来の得られたコロニーのゲノムDNAを抽出した。その後、HLA-DRB1遺伝子内の標的配列でindel(挿入または欠失)が誘導されたかを、T7エンドヌクレアーゼI(T7E1)突然変異検出アッセイにより分析して、結果を図5に示す。 図5に示される通り、分析の結果として、合計で75種類のiPSC細胞株のうち、indelがDRB1遺伝子の対立遺伝子#1(対立遺伝子1と示される)で誘導されていたiPSCは7種類の細胞株であると判定され(赤色矢印);indelが対立遺伝子#2(対立遺伝子2と示される)で誘導されているiPSCは2種類の細胞株であると判定された(青色矢印)。図5は、分析された合計75種類のiPSC細胞株の中から42種類の細胞株のアガロースゲル分析の結果を示す。 また、ヒト誘導型多能性幹細胞#8(iPSC#8)を用いるindel誘導の結果として、クローン#8が対立遺伝子2でのindelを含むことが明らかになっていることが、図5で見出される(図5を参照されたい)。このことを確認するために、標的配列領域をPCRにより増幅し、続いて配列分析した。結果を図6に示す。 結果として、図6に示される通り、対立遺伝子1には変化がないが、対立遺伝子2に1個のヌクレオチド(「A」)が挿入されていたことが確認された。 さらに、プラスミドDNAではなく、Cas9タンパク質およびHLA-DRB1 gRNAを、エレクトロポレーションによりヒト誘導型多能性幹細胞#12(iPSC#12)に送達した。続いて、iPSC#12由来の得られたコロニーのゲノムDNAを抽出した。その後、HLA-DRB1遺伝子内の標的配列でindel(挿入または欠失)が誘導されたかを、T7エンドヌクレアーゼI(T7E1)突然変異検出アッセイにより分析して、結果を図7に示す。 図7に示される通り、分析結果により、クローン#4、#6、#9、および#10では、indelが対立遺伝子1に存在し、対立遺伝子2には変化がなかったことが示された。 図7では、対立遺伝子1でのindelを有することが示されたクローン#4、#6、#9、および#10の中で、クローン#4が選択され、indelの存在に関する確認に供された。このために、対立遺伝子1および2の標的配列領域をPCRにより増幅し、続いて配列分析に供した。結果を図8に示す。 結果として、図8に示される通り、対立遺伝子1に1個のヌクレオチド(「A」)が挿入され、対立遺伝子2には変化がないことが確認された。 実施例5:完全ノックアウトされたDrb1多能性幹細胞株の樹立 クラスIIタンパク質は、主にBリンパ球、マクロファージ、および樹状細胞で発現される。クラスIとは異なり、その欠損は、NK細胞媒介細胞溶解を惹起しない。したがって、本発明者らは、完全ノックアウト型Drb1 hESCを作製した。 これを行なうために、精製された組み換えCas9タンパク質を、Drb1遺伝子座を標的とする、in vitroで転写したsgRNAと複合体化した。得られたタンパク質-RNA複合体を、エレクトロポレーションを介してH9、CHA15 hESおよびhiPSC12株へとトランスフェクトした。トランスフェクション72時間後、細胞を分離し、Rhoキナーゼ(ROCK)阻害剤を添加したhESC培地中に、非常に低密度で単一細胞として再配置した。 Drb1ノックアウトを確認するために、本発明者らは、ディープシーケンスおよびSangerシーケンスを行なった。選択された代表的クローンH9のうち、#85は5ntおよび13nt欠失パターンを示し、CHA15 #34は両方の対立遺伝子での1nt挿入を示し、かつ1nt挿入および32nt欠失パターンがhiPSC12クローン#13で観察された(図9)。本発明者らのDrb1ノックアウトクローンのすべてが、安定的な増殖を示し、10回の継代にわたって丸形で密集した形態を見せた。 本発明者らのクローンの多能性をさらに確認するために、本発明者らは免疫染色を行なった。免疫細胞化学分析は、Drb1 KOクローンが多能性マーカーであるOct4、Nanog、APを適正に発現し、かつ核型異常は見られなかったことを確認した(図10)。 実施例6:Drb1ノックアウト、ならびにHLA-AおよびHLA-Bホモ接合体多能性幹細胞株の樹立 4種類のHLA-AおよびBホモ接合体細胞株を得るために、本発明者らは次に、Dr1b KOクローンでHLA-AおよびHLA-Bを標的化した。 Cas9タンパク質およびin vitro転写したsgRNA送達法を再度用いて、本発明者らは、まずHLA-A単一対立遺伝子突然変異体細胞を樹立した。単一細胞由来クローンの配列決定は、標的領域での単一対立遺伝子indelパターンを有するクローンを特定するために分析された。図11は、Drb1 KO CHA 15 hES細胞株由来のHLA-A単一対立遺伝子突然変異体クローンのスキムおよび突然変異パターンをまとめる。 対立遺伝子特異的に増幅されたPCR産物のT7E1分析は、一方の対立遺伝子のみに対する特異的切断を示した。配列決定の結果は、クローンA#69が対立遺伝子A*31での1nt挿入を有し、かつクローンA#300が対立遺伝子A*33での1nt欠失を有することをさらに確認した(図12)。 HLA-A突然変異の確認後、本発明者らは、HLA-B遺伝子を標的化するsgRNAを導入した(図13)。クローンを、対立遺伝子特異的T7E1および配列決定により調べた。図14および図15は、CHA15 hES細胞株由来の代表的クローンを示す。H9 hESおよびiPS12での並行実験も行なった。 本発明者らは、本発明者らのクローンでのいかなる形態学的異常または増殖異常も観察しなかった。最後に、本発明者らは、Drb1完全KO、HLA-A*02+/*03-およびHLA-B*35+/*44-遺伝子型を有する1種類のH9クローンの多能性を特性決定した。免疫細胞化学分析は、これらの細胞が多能性マーカーであるOct4およびNanogを発現することを確認した。 本発明者らの研究は、HLAホモ接合ヒト多能性幹細胞を、CRISPR-Cas9媒介遺伝学的介入を用いて容易に作製できることを実証する。ここで、本発明者らは、既存の多能性細胞株から、これらのクローンの小規模ライブラリーを作製した。本発明者らのプロトコールは、典型的にはドナー-レシピエント適合細胞株を得るために時間および費用のかかる細胞単離手順を必要とするSNTまたは因子媒介再プログラミングを排除するので、これは著しいことである。本発明者らは、本発明者らのプロトコールが、患者免疫適合性多能性幹細胞を提供することにより、研究から臨床への細胞ベース療法の移行を加速するであろうことを予測する。重要なことに、GMP条件下で誘導された、十分に特性決定された細胞株を用いることは、初期コストを大幅に低減するであろう。さらに、プラスミド形態での送達ではなく、Cas9のタンパク質ベースの送達は、ゲノムへのプラスミドベクターの考えられるインテグレーションを防止する。 まとめると、本発明者らの研究は、容易に入手可能なhES株またはiPSC株からの患者免疫適合性多能性幹細胞の作製を可能にする。 上記の説明から、本発明が属する分野の当業者は、本発明の技術的精神または本質的な特徴を変更することなく他の具体的形態で本発明を具現化できることを理解することができる。これに関して、上記の実施例は、すべての態様で、例示的であり、かつ限定的でないものと理解されるべきである。上記の詳細な説明ではなくむしろ、添付の特許請求の範囲およびその均等物の意味および範囲から誘導されるすべての変更または改変形態が、本発明の範囲内に含められるものと解釈されなければならない。
- 특허 등록번호
- 6598860B
- 특허 출원번호
- 2017527526
- 출원일
- 등록일
- 국가
- 일본
- 출원인
- 차의과학대학교 산학협력단, 기초과학연구원
- 발명자
- スー キム,ジン, ヨウン ホワン,ドン
- 중요 키워드
- hla, gene, cells, immunocompatible, cell